



Разработка точного датчика лизосомального pH с использованием саморазлагающихся наночастиц SiO₂
Аннотация
Кислый pH лизосом тесно связан с аутофагией; таким образом, точное знание изменений pH лизосом даст больше информации о процессе и статусе аутофагии. Однако до сих пор можно было указывать только изменения pH в относительно широком диапазоне, точное обнаружение pH лизосом никогда не достигалось. В нашем исследовании мы установили индикатор pH эндо/лизосом на основе системы саморазлагающихся наночастиц SiO2 с конкретными параметрами синтеза. Центральный концентрированный метиленовый синий (MB) в наночастицах с центральной полой структурой демонстрировал чувствительное высвобождение как функция значений pH от 4,0 до 4,8, что точно соответствует pH диапазону лизосом. Линейная корреляция оптической плотности (OD) и значений pH была установлена, которая использовалась для обнаружения pH лизосом в 6 разных клеточных линиях. Более того, с помощью этой системы нам удалось точно обнаружить средние изменения pH лизосом до и после эндоцитоза наночастиц черного мезопористого кремния (BPSi), проясняя механизм прекращения аутофагии после эндоцитоза BPSi. Таким образом, люминальный pH-индикатор на основе саморазлагающихся наночастиц может предоставить новую методологию и стратегию для лучшего понимания pH лизосом, а затем указывать больше деталей о процессе аутофагии или других важных сигналах о метаболизме.
Введение
Лизосомы служат конечным пунктом назначения для макромолекул, где эти макромолекулы деградируют гидролитическими ферментами, активированными низким pH [1]. Кислый pH лизосом, поддерживаемый вакуолярным H+-ATPазой (v-ATPase) [2], который накачивает протоны из цитоплазмы в люмен лизосомы, служит для поддержания активности ~60 типов гидролитических ферментов [3]. Более того, недавние литературные отчеты раскрыли, что кислый pH лизосом тесно связан с аутофагией [4], так что точное знание изменений pH лизосом даст больше информации о процессе и статусе аутофагии. Основываясь на наших исследованиях и обзоре литературы, эндоцитоза аминопозитивно заряженных наночастиц, вероятно, увеличит изменение pH в эндо/лизосомах, таких как первичные и вторичные амин PEG-декорированные наночастицы или некоторые гидрофильные декорации на поверхности частиц [5, 6].
Увеличение pH, индуцируемое эндоцитозом аминнанчастиц, драматически увеличит ядерную локализацию транскрипционного фактора EB (TFEB) [7], что приводит не только к транскрипционной регуляции пути, но и вызывает дисфункцию лизосом, в конечном итоге приводя к блокировке аутофагического потока [7–9]. Поскольку TFEB регулирует аутофагию, и, следовательно, его overexпрессия приводит к значительному увеличению производства аутофагосом в культивируемых клетках.
Таким образом, для предсказания процесса аутофагии и деталей аутофагии, точное измерение pH лизосом и его изменений является очень важным. До сих пор, из обзора литературы по индикации значения pH эндо/лизосом [10] и коммерческих продуктов для обнаружения значений pH эндо/лизосом, можно было указывать только изменения pH в относительно широком диапазоне, и точное обнаружение pH лизосом никогда не достигалось. Таким образом, для понимания деталей аутофагии, установление метода точного обнаружения люминальных изменений pH является важным подходом.
Основываясь на нашем предыдущем опыте с саморазлагающимися наночастицами SiO2, в этом исследовании мы установили точный pH-индикатор, который мог реализовать обнаружение люминальных изменений pH. Наночастицы SiO2 имеют хорошие преимущества в настраиваемом размере и биосовместимости [11]. Устанавливая конкретные параметры синтеза, установленный саморазлагающийся SiO2 pH-индикатор мог чувствительно высвобождать полезную нагрузку метиленового синего (MB) в pH 4,0–4,8, что точно соответствует pH диапазону лизосом. Более того, высвобождение MB представляло линейную корреляцию с изменениями значения pH (схема 1). Затем мы протестировали применимость pH-индикатора на клеточном уровне, введя 6 разных клеточных линий, успешно определив средние изменения pH лизосом до и после эндоцитоза наночастиц BPSi, проясняя механизм прекращения аутофагии после эндоцитоза BPSi. Таким образом, люминальный pH-индикатор на основе саморазлагающихся наночастиц может предоставить новую методологию и стратегию для лучшего понимания pH лизосом, а затем указывать больше деталей о процессе аутофагии или других важных сигналах о метаболизме.
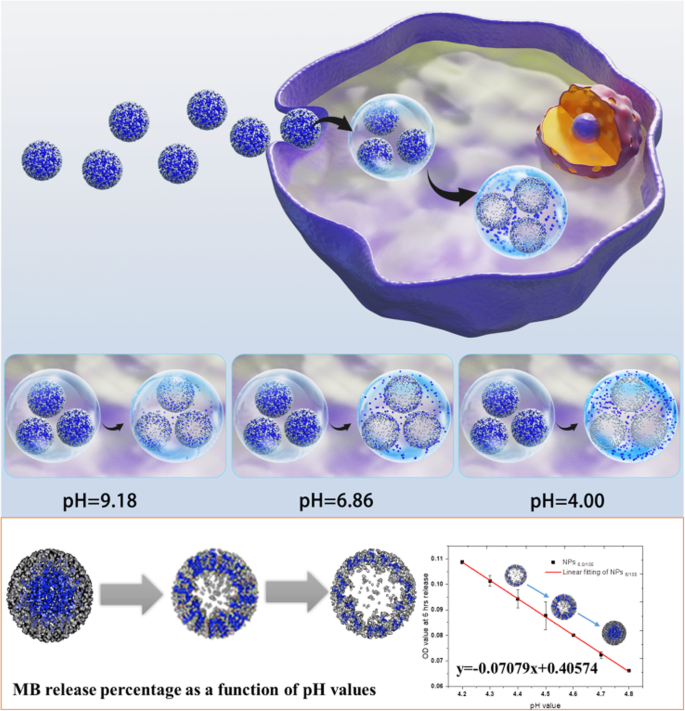
Схематическое изображение измерения pH лизосом MB@SiO2 в живых клетках.
Материалы и методы
Раздел материалов
Натриевыйсилицид (NaSi) и Si пластины (диаметр 20 см, p+ (100), 0,01–0,02 Ω·см) предоставлены SiGNa Chemistry Inc. и Ocmetic Inc. соответственно. Бромид аммония (NH4Br, 99%), бромид натрия (NaBr, 99%), толуол (бесводный, 99,8%), соляная кислота (HCl, 37%), MB и тетраэтилортсиликат (TEOS) приобретены у Sigma-Aldrich. 0,5 кДа метокси-PEG-силана и 2 кДа метокси-PEG-силана приобретены у Fluorochem Ltd. и Laysan Bio Inc. соответственно. Среда RPMI 1640 предоставлена Life Technologies. Фетальная бычья сыворотка (FBS) приобретена у TianHang biological technology. Натрия бикарбонат, сульфат стрептомицина, пенициллин G, HEPES, раствор лизоцима, CellLight Early-endosomes-GFP, LysoTracker™ Red DND-99, Pierce® BCA Protein Assay Kit, усиленная хемилюминесценция, pHrodo™ Red Transferrin конъюгат, Live Cell Imaging Solution и реагент Trizol приобретены у Thermo Fisher Scientific. Этанол и аммиачно-водный раствор предоставлены Sinopharm. Набор BioRT Master HiSensi cDNA First-Strand Synthesis kit приобретен у Hangzhou Bioer Technology Co., Ltd. RIPA лизат приобретен у Heart Biological Technology Co., Ltd. Антитела P62, TFEB и β-актин приобретены у Proteintech Group, Inc. Антителo LC 3B предоставлено Abcam. 2-(4-Пиридил)-5-((4-(2-диметиламиноэтил-аминокарбамоил) метокси) фенил) оксазол (PDMPO) предоставлен Yeasen Biotech Co., Ltd.
Цель, дизайн и установка исследования
Цель этого исследования — (1) изучить влияние наночастиц BPSi на аутофагию в клетках HepG2, (2) выяснить скрытый механизм изменений значения pH лизосом, влияющих на аутофагию, (3) установить точный индикатор pH лизосом, который мог бы точно измерять pH лизосом, и, наконец, (4) указать влияние флуктуаций pH на аутофагию. Для реализации вышеуказанных целей мы использовали эксперимент секвенирования транскриптома для изучения изменений генов транскриптома в клетках HepG2 после кормления наночастицами BPSi и проверили это методами RT-qPCR и Western экспериментами. Флуоресцентные красители, такие как PDMPO, использовались для измерения изменения лизосомального pH в клетках HepG2 после кормления BPSi. Для точного измерения pH лизосом мы разработали наночастицы MB@SiO2 с 10 параметрами и протестировали характеристики этих 10 видов наночастиц через эксперименты, такие как DLS и HR-TEM. Эффективность загрузки MB и кинетика высвобождения 10 серийных систем саморазлагающихся наночастиц тестировались в растворах с разным pH и клетках HepG2. Для верификации внутриклеточного местоположения наночастиц после входа в клетку, мы проводили клеточный TEM эксперимент и живую конфокальную микроскопию. Наконец, мы измеряли изменения лизосомального pH в 6 видах клеток после кормления BPSi для проверки универсальности наночастиц MB@SiO2 для измерения изменений лизосомального pH.
Синтез наночастиц BPSi
Наночастицы BPSi были приготовлены нашим предыдущим методом [12] и поставлены нашим коллегами (Wujun Xu, Department of Applied Physics, University of Eastern Finland). Приготовление BPSi, NaSi, аммонийной соли и NaBr (NaSi: NH4Br: NaBr в соотношении 1:4:4, масса/масса/масса) измельчалось в перчатка-боксе с атмосферой Ar. Их позволяли реагировать в трубчатой печи под атмосферой N2 при 240 °C в течение 5 ч (Уравнение 1). После охлаждения до комнатной температуры полученные микропартицы очищались промыванием 0,5 M HCl и 1,0 M HF растворами отдельно. Микропартицы шариково измельчались в этаноле при 1000 об/мин в течение 15 мин, и наночастицы BPSi с желаемым диаметром собирались путем регулирования скорости центрифугирования.
$$ \mathrm{NaSi}+{\mathrm{NH}}_4\mathrm{Br}\to \mathrm{NaBr}+{\mathrm{NH}}_3+\mathrm{Si}/\mathrm{H}+{\mathrm{H}}_2 $$ (1)
Через эксперимент динамического светового рассеяния изучались распределение диаметра и заряд поверхности наночастиц. Все наночастицы диспергировались в среде после стерилизации легкой ультразвуковой обработкой (5 с для равномерного распределения в растворе, ультразвуковой очиститель SB-5200DT, Ningbo Scientz Biotechnology Co., Ltd.) непосредственно перед их введением в клетки.
Установка 10 серийной системы саморазлагающихся наночастиц
10 серийных саморазлагающихся наночастиц синтезировались методиками, о которых мы сообщали ранее [13–16], с модифицированными параметрами. В типичной процедуре определенное количество MB сначала добавлялось к смеси этанола (75 мл) с аммиачно-водным раствором (25%, 3,4 мл), после чего добавлялось определенное количество TEOS. Серийные саморазлагающиеся MB@SiO2 наночастицы получались после перемешивания в течение 24 ч и промывания 3 раз перед их сушкой. Количества добавленного MB и TEOS в протоколах описаны в Таблице 1. Значение 1,0/100 в NPs1.0/100 представляло запас MB и TEOS при синтезе наночастиц, с 1,0 мг MB и 100 мкл TEOS. Значения 1,5/100 в NPs1.5/100 и других согласованы с 1,0/100.
Клеточная культура
Для проверки эффективности и универсальности pH-индикатора на основе саморазлагающихся наночастиц мы пытались протестировать его на специфических раковых клеточных линиях, полученных от опухолей. Таким образом, мы выбрали клеточные линии рака печени, легких, кишечника и меланоцитомы как объекты исследования. Клеточные линии человеческих клеток рака кишечника HCT116, HCT8 и HCT15; человеческие клетки рака печени HepG-2; человеческие клетки рака легких A549; и мышиные меланоцитомы B16 поддерживались в среде RPMI 1640 (Life Technologies) с добавлением 10% термоинактивированной FBS, 2,0 г/л натрий бикарбонат, 0,1 г/л сульфат стрептомицина, 0,06 г/л пенициллин G и 5,958 г/л HEPES. Клетки поддерживались в стандартном инкубаторе для клеточной культуры при 37 °C в увлажненной атмосфере с 5% CO2.
Характеризация 10 серийных систем саморазлагающихся наночастиц
Морфология всех серийных наночастиц характеризовалась HR-TEM в режиме STEM, и Si картирование изучалось EDS элементным картированием. Анализ распределения размера наночастиц выполнялся программным обеспечением ImageJ путем расчета диаметров наночастиц в случайно выбранных STEM изображениях. Зета-потенциал наночастиц и индекс полидисперсности (PDI) измерялись исследованием динамического светового рассеяния (DLS) в сериальных буферах с конкретными значениями pH. Данные анализировались SPSS15.0, и статистические результаты представлялись как среднее ± С.К.О.
Изучение эффективности загрузки MB и кинетики высвобождения 10 серийных систем саморазлагающихся наночастиц
Для изучения эффективности загрузки MB и кинетики высвобождения, стандартная кривая MB в сериальных концентрациях сначала устанавливалась. Абсорбция MB проводилась UV-Vis спектром с абсорбцией на 660 нм, что является λmax мономера MB. Эффективность загрузки MB рассчитывалась уравнением ниже: эффективность загрузки MB (%) = количество инкапсулированного MB / (общее количество введенного MB).
Высвобождение MB из 10 серийных наночастиц изучалось в чистой воде и буферах pH с разными значениями pH (pH 4,0, pH 6,86 и pH 9,18) и растворе лизоцима (Thermo Scientific™ #90082). Более того, кинетика высвобождения MB после определенной продолжительности в разных буферах pH также изучалась. Значения OD на 660 нм и проценты высвобождения MB как функция времени затем изучались.
Более детально, исследования высвобождения MB проводились по протоколам ниже: растворили 10 серийных наночастиц в 15 мл стандартного буфера pH 4,0, 6,86 и 9,18 с раствором лизоцима соответственно; и проводили высвобождение MB в миксере Hula при 37 °C. В течение следующих 15 дней 1 мл каждого образца собирался, затем центрифугировался при 12000 об/мин в течение 10 мин. Надстановка и осадок измерялись для их спектров поглощения при 200–800 нм.
Более того, высвобождение MB в точных буферах pH с раствором лизоцима в диапазоне pH от 4,1 до 5,5 также изучалось с теми же протоколами выше. Конкретные временные продолжительности (6 ч, 12 ч и 24 ч) устанавливались как точки наблюдения. Абсорбции на 660 нм регистрировались в каждом образце. Линейная зависимость абсорбции каждого pH раствора и сумма квадратов остатков подсчитывались в каждую точку времени соответственно.
Для обнаружения профилей высвобождения MB в клетках клетки HepG-2 культивировались в 75 см2 культурной колбе и кормились наночастицами (300 мкг/мл), когда клетки пролиферировали до 70% культурной колбы. Каждые 30 мин позже клетки собирались. Клетки многократно заморозали и размораживали для полного высвобождения MB в клетках. Клеточные лизаты центрифугировались при 12000 об/мин в течение 10 мин. Надстановка получалась и измерялась ее абсорбция на 660 нм для расчета общего количества высвобожденного MB. В этом исследовании клетки HepG2 выбирались как объекты исследования благодаря их быстрой пролиферации, которая могла минимизировать дисперсию среди всех 10 тестированных групп.
Клеточная колокализация 10 серийных наночастиц и производительность высвобождения в 6 разных клеточных линиях
Клеточный TEM использовался для изучения колокализации наночастицы в эндо/лизосомах следуя стандартным протоколам клеточного TEM. Клетки посеивались в интенсивности 1 × 10⁶ клеток/колба и инкубировались в течение 24 ч, позволяя прикреплению клеток. Десять серийных наночастиц в среде с одинаковой концентрацией (100 мкг/мл) инкубировали с клетками еще 12 и 24 ч соответственно. Клетки затем промывали PBS 3 раза для удаления избыточных наночастиц, затем фиксировали в 2,5% глютаральдегидном растворе более 1 дня. Фиксированные клетки затем промывали и окрашивали оксидом осмия, 1% в деионизированной воде в течение 1 ч, затем промывали PBS 3 раза и DI водой 2 раза. Классический протокол клеточного TEM [17, 18] проводился далее, и сечения толщиной 90 нм собирались для TEM наблюдения. Высвобождение MB как функция значений pH изучалось в 6 клеточных линиях с NPs6/100 и NPs7.5/80. Также значения OD от высвобождения MB и проценты высвобождения MB регистрировались для анализа данных.
Исследование внутриклеточного поглощения наночастиц MB@SiO2
Живая конфокальная микроскопия использовалась для оценки клеточного поглощения и внутриклеточной судьбы наночастиц MB@SiO2. Ранние эндосомы клеток HepG-2 окрашивались (CellLight Early-endosomes-GFP, BacMam 2.0 ThermoFisher Scientific C10586, с возбуждением/эмиссией ~ 488/510 нм) в течение 16 ч. А затем клетки инкубировали с NPs6/100 (MB возбуждение/эмиссия: 640/650–700 нм) при концентрации наночастиц 100 мкг/мл в определенные временные интервалы (2 ч, 2,5 ч, 3 ч, 5 ч и 6 ч). Перед съемкой изображений лизо-трекер окрашивался LysoTracker™ Red DND-99 (Thermo Fisher Scientific L7528, возбуждение/эмиссия: 577/590 нм) в течение 40 мин. После этого удаляли окрашивающий раствор и промывали клетки 2–3 раза в PBS. Изображения снимались с помощью Nikon A1R Confocal Microscope.
Секвенирование транскриптома для оценки изменения геновой экспрессии после кормления BPSi
Общее извлечение РНК контрольной группы и группы, обработанной BPSi, выполнялось с использованием реагента Trizol следуя стандартным операционным процедурам. Качество исходного общего образца РНК для эксперимента секвенирования обнаруживалось с помощью спектрофотометра NanoDrop ND-2000. Общая РНК, прошедшая контроль качества, использовалась в последующих экспериментах секвенирования. Сравнение геновой экспрессии выполнялось секвенированием следующего поколения. Все программы секвенирования выполнялись BGI-Shenzhen Corporation (Шэньчжэнь, Китай) с использованием платформы BGISEQ-500. Сырые данные, полученные секвенированием, выполнялись контроль качества для определения, подходят ли данные секвенирования для последующего анализа. Если прошли, выполнялся количественный анализ генов на основе уровней геновой экспрессии и значимый обогащенный анализ онтологии генов (GO) на дифференциально экспрессированных генах между выбранными образцами.
Обратная транскрипция количественная полимеразная цепная реакция (RT-qPCR) для подтверждения активации геновой сети TFEB-CLEAR
Общая РНК извлекалась из культивированных клеток HepG-2 контрольной и BPSi-обработанной групп с использованием реагента Trizol и обратно транскрибировалась в цДНК с использованием набора BioRT Master HiSensi cDNA First-Strand Synthesis Kit (Hangzhou Bioer Technology Co., Ltd.) со случайными праймерами. цДНК использовалась для амплификации геновой сети TFEB-CLEAR количественным ПЦР с системой Applied Biosystems™ 7500 real-time PCR system (Applied Biosystems, Life Technologies, Carlsbad, CA) с актином как референсным контролем. Праймеры, использованные для количественного RT-PCR, перечислены в Таблице S4.
Вестерн-блот анализ для подтверждения активации аутофагии после кормления BPSi
Клеточные белки контрольной группы и групп, обработанных разными концентрациями BPSi, извлекались RIPA лизатом (Heart Biological Technology Co., Ltd.). Ингибитор протеазы добавлялся к RIPA лизату и предварительно охлаждался на льду. Клетки промывали 3 раза предохлажденным PBS. Сливали жидкость полностью и ставили чашку в лед на 2 мин. Четыреста микролитров RIPA лизата добавлялись на поверхность всей чашки, пипетировали несколько раз пипеткой и инкубировали на льду в течение 30 мин, во время чего чашку трясли несколько раз для полного лизирования клеток. Лизированная клеточная жидкость переносилась в 1 мл еппендорфовские пробирки и центрифугировалась при 13 000 об/мин в течение 10 мин, 4 °C. Полученная надстройка кипятили в воде в течение 10 мин и помещали в –20 °C для последующего использования. Концентрация белка kvantифицировалась с использованием Pierce® BCA Protein Assay Kit (Thermo scientific).
Клеточные экстракты, содержащие 25 мкг общего белка, напрямую подвергались SDS-PAGE и переносились. мембраны блокировали 5% обезжиренным молоком и зондировали первичными антителами, распознающими P62 (Proteintech #18420–1-AP), TFEB (Proteintech #13372–1-AP), LC 3B (Abcam #ab192890) и β-актин (Proteintech #20536–1-AP). Вторичные антитела выбирались согласно виду происхождения первичных антител и обнаруживались усиленной хемилюминесценцией (Pierce) или с использованием системы Bio-Rad ChemiDoc XRS + Gel Imaging System (Bio-Rad, USA). Нормализованная интенсивность полос P62, TFEB и LC 3B относительно β-актина kvantифицировалась денситометрией с использованием программного обеспечения ImageJ в группах BPSi, и данные представляются как среднее ± С.К.О. из трех независимых экспериментов.
Измерение клеточного pH с помощью PDMPO и pHrodo™ Red Transferrin конъюгата конфокальной микроскопией
Изучение PDMPO
1 × 10⁵ клеток HepG-2 культивировались на стерильных конфокальных пластинках на ночь, и наночастицы BPSi кормили с концентрацией 100 мкг/мл. На следующий день, перед иммунофлуоресцентным окрашиванием, слайды промывали трижды 0,01 M фосфатно-буферным физиологическим раствором (PBS), pH 7,4, затем добавляли 1 мкМ красителя PDMPO (Ex/Em = 329/440). После промывки PBS трижды клетки инкубировали со свежей средой RPMI-1640 и наблюдали под флуоресцентным микроскопом (Nikon A1R, Япония) с CCD камерой и делали снимки в течение 5 мин, и отношение интенсивности синей и зеленой флуоресценции в лизосомах затем рассчитывалось согласно процедуре Chen et al. [19].
Изучение pHrodo™ Red Transferrin конъюгата
Клетки HepG-2 посеивались на конфокальные пластинки тем же способом для прикрепления клеток на 24 ч, затем держали пластинки на льду 10 мин. Промывали клетки холодным Live Cell Imaging Solution, содержащим 20 мМ глюкозы и 1% BSA. Добавляли pHrodo™ Red Transferrin конъюгат (Ex/Em = 560/585 нм) при 25 мкг/мл в Live Cell Imaging Solution и инкубировали при 37 °C в течение 20 мин, затем промывали клетки в Live Cell Imaging Solution. Наблюдение также проводилось конфокальной микроскопией. Количественный анализ интенсивности изображений микроскопии выполнялся программным обеспечением ImageJ.
Обнаружение клеточного лизосомального pH
Клетки A549, HepG-2, HCT8, HCT15, HCT116 и B16 культивировались в 75 см2 культурной колбе и кормились наночастицами, когда клетки пролиферировали до 70% культурной колбы, и через 6 ч клетки собирались. Клетки многократно заморозали и размораживали для полного высвобождения MB в клетках. Клеточные лизаты центрифугировались при 12000 об/мин в течение 10 мин. Надстройка получалась и измерялась ее абсорбция на 660 нм для расчета общего количества высвобожденного MB. Абсорбция NPs6.0/100 при стандартном pH сравнивалась для получения значения pH каждой клетки.
Статистический анализ
Статистический анализ выполнялся программным обеспечением SPSS15.0 с использованием двустороннего дисперсионного анализа (ANOVA) для независимых групп и метода Tukey HSD для теста множественных сравнений. Статистическая значимость основывалась на значении P < 0,05.
Результаты и обсуждение
Сначала мы обнаружили дифференциальную геновую экспрессию, когда клетки кормили двух PEG-функциональными черными пористыми кремнеземными наночастицами (BPSi NPs) (предоставленными нашей коллабораторной лабораторией [12]). Изменение дзета-потенциала от −18,5 до +2,8 мВ также указывало на успешную поверхностную двух-PEGилизацию (Рис. S1a). Средний диаметр наночастиц BPSi составлял 156 нм (Рис. S1b). Основываясь на кластерной тепловой карте дифференциальной геновой экспрессии (Рис. S2), мы выбирали более чем 2-кратные дифференциальные геновые экспрессии для дальнейшего исследования. GO и KEGG вводились для анализа дифференциальных генов. Из GO обогащенных пузырьковых карт (Рис. 1a) метаболические и лизосом-ассоциированные гены, включая сборку фаголизосом, фагоцитоз и ксенобиотический метаболический процесс, выбирались для дальнейшего анализа. Особенно, TFEB-CLEAR [17]-ассоциированные геновые экспрессии значительно увеличивались. Результаты RT-PCR (Рис. 1b) также верифицировали результаты секвенирования генов, гены на TFEB-координированной лизосомальной экспрессии и регуляции (CLEAR) пути значительно увеличивались, такие как CTSD, CTSF, TFEB, MFN1, LAMP2 и TPP1. Эти гены были отмечены на лизосомальном пути, как показано на Рис. S3. Их экспрессия выше, чем у контрольной группы, и имеет статистическую значимость (PBPSi VS Control < 0,05). И TFEB позитивно регулирует экспрессию лизосомальных генов, контролирует популяцию лизосом и способствует клеточной деградации лизосомальных субстратов.
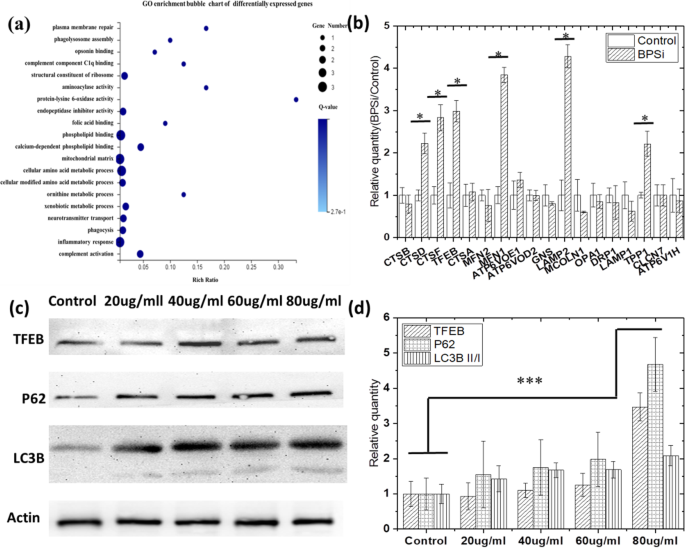
Аутофагия активируется в HepG-2 клетках после кормления BPSi. a GO обогащенная пузырьковая карта дифференциально экспрессированных генов, найденных секвенированием транскриптома. b Верификация изменений генов в геновой сети TFEB-CLEAR после обработки BPSi экспериментами RT-qPCR. c Экспрессия белков P62, TFEB, LC3B II/I после обработки BPSi. d Нормализованная интенсивность серой полосы P62, TFEB, LC3B II/I белка в BPSi-обработанных группах согласно контрольной группе. Данные представлены как среднее ± С.К.О.
Дополнительно, TFEB регулирует аутофагию, и его overexпрессия приводит к значительному увеличению производства аутофагосом в культивируемых клетках благодаря тому, что основная функция гена TFEB — индуцировать биосинтез лизосом и способствовать возникновению аутофагии [20]. Вестерн-блот анализ также использовался для подтверждения того, происходила ли аутофагия, когда клетки кормили наночастицами BPSi. Целью Western теста было дополнительное подтверждение того, что экспрессия TFEB увеличилась и возникла клеточная аутофагия после кормления BPSi. Белки LC3B и P62 являются маркерами аутофагии. Когда аутофагия происходит, экспрессия микротюбулярно-ассоциированного белка 1A/1B-легкой цепи 3B (LC3B) II/I увеличивается. p62 — рецептор для везикул, которые будут деградированы аутофагией, и также рецептор для убикитинированных белковых агрегатов, подлежащих очистке, и его экспрессия уменьшается, когда аутофагия происходит. Поэтому мы измеряли экспрессию этих белков в Western эксперименте.
Из результатов Western блота, показанных на Рис. 1c, d, белки TFEB (P80 мкг/мл VS control = 0,000008), LC3B II/I (P80 мкг/мл VS control = 0,000297) и p62 (P80 мкг/мл VS control = 0,000016) все значимо урегулировались. Поскольку урегуляция белков TFEB и LC3B II/I указывает на активацию аутофагии [18], мы подозревали, что эндоцитоз BPSi способствует возникновению аутофагии. Однако белок p62 должен быть дрегулирован в процессе аутофагии, из-за природы переносного белка, который приносит эндосомы к лизосомам и в конечном итоге деградирует. В нашем исследовании значимая урегуляция p62 указывала на прекращение деградации в процессе эндо-лизосомального слияния [21], что, вероятно, вызвано повышением pH в эндо/лизосомальных везикулах. Таким образом, эндоцитоз BPSi может сначала индуцировать возникновение аутофагии, затем ингибировать процесс аутофагии за счет увеличения значений pH эндо/лизосом благодаря своей амидной щелочной природе.
Для подтверждения характеристик повышения pH в эндо/лизосомах эндоцитозом BPSi, в нашем исследовании использовались два коммерческих pH флуоресцентных зонда: pHrodo™ Red Transferrin Conjugate (Thermo Fisher #P35376) и RatioWorks™ PDMPO.
pHrodo™ Red как коммерческий внутриклеточный pH-индикатор обычно слабо флуоресцирует при нейтральном pH, но увеличивает флуоресценцию по мере снижения pH. Предполагалось, что он квантифицирует цитозольный pH в диапазоне 9–4 с pKa ~ 6,5 с возбуждением/эмиссией 560/585 нм. Мы могли получить качественный аналитический вывод от определений 6 клеточных линий, что эндоцитоз наночастиц BPSi имеет способность повышать значения pH в эндо/лизосомах, из-за ослабления красных флуоресцентных сигналов (Рис. S4 и S5). Однако после повторения экспериментов несколько раз следуя протоколам эксплуатации продукта, мы едва могли количественно проанализировать точное значение pH, которое снижалось среди разных клеточных линий до или после кормления наночастицами BPSi из-за отсутствия корреляции между интенсивностью и установленными значениями pH.
PDMPO затем использовался как лучшее решение для индикации изменений значения pH после эндоцитоза BPSi, который вводит техники ратиообраза в количественное измерение pH. PDMPO [2-(4-пиридил)-5-((4-(2-диметиламиноэтил-аминокарбамоил) метокси) фенил) оксазол] характеризуется как ацидотропный дуальный возбуждения и дуальный эмиссии pH зонд. Он излучает интенсивную зеленую флуоресценцию при низком pH и дает интенсивную синюю флуоресценцию при высоком pH. Эта уникальная pH-зависимая флуоресценция делает PDMPO идеальным pH зондом для кислых органелл с pKa = 4,47. PDMPO селективно маркирует кислые органеллы (такие как лизосомы) живых клеток, и два отличительных пика эмиссии могут использоваться для мониторинга флуктуаций pH живых клеток в ратиообразных измерениях. Однако мы все равно не смогли измерить значения pH в 6 клеточных линиях до и после кормления BPSi. Как показано в Рис. S6, никаких значимых различий не наблюдалось во всех 6 клеточных линиях до и после кормления BPSi. Хотя корреляция была установлена между соотношением Синий/Зеленый и значениями pH (Рис. S7), нелинейная корреляция от pH 4–5 делает метод PDMPO неудачным в количественном анализе эндо/лизосом до и после кормления BPSi.
Из данных двух коммерческих pH индикаторов выше мы сначала продемонстрировали наше подозрение, что PEG-декорированные наночастицы с амидом на цепи PEG могут повышать pH эндо/лизосом из-за щелочной природы амида. Однако без количественного анализа точных изменений pH (диапазон 0,1 pH) мы все равно не можем установить корреляции между статусом аутофагии и значениями pH эндо/лизосом, тем самым неудачно в предсказании аутофагии.
Основываясь на нашем предыдущем исследовании саморазлагающихся наночастиц [13, 14] [15, 22], мы сохранили ту же концентрацию гидроксида аммония в 75% этаноле, но скорректировали концентрации MB и TEOS. Две серии количества TEOS были установлены как 100 мкл и 80 мкл, для получения разной толщины оболочки и размера пор. Десять серий количества MB были установлены для получения разных размеров центральной полой структуры и эффективностей загрузки MB.
Количества добавленного MB и TEOS в протоколах описаны в Таблице 1 ниже.
Как показано на Рис. 2a, b, размер наночастицы увеличивался с увеличением количества MB, в обеих концентрациях TEOS (100 мкл и 80 мкл). При той же концентрации MB размер частицы увеличивался с увеличением количества TEOS. Более того, с увеличением количества TEOS толщина оболочки росла, что было доказано элементным картографированием (показано как Рис. 2c). Индекс полидисперсности (PDI) и заряд поверхности наночастиц показаны на Рис. S8 и Таблице S1. Морфологические исследования предсказывали, что с увеличением количества MB эффективность загрузки вырастет, приводя к более быстрому профилю высвобождения, в то время как с увеличением количества TEOS высвобождение замедлится. И нам нужно было найти подходящие концентрации MB и TEOS, с которыми мы могли бы получить оптимизированные наночастичные системы, которые могли бы сделать профиль высвобождения MB линейно коррелированным с изменениями pH.
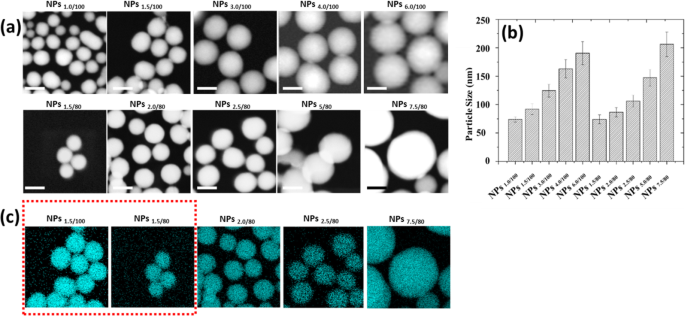
Морфологическая характеристика 10 различных саморазлагающихся наночастиц с конкретным количеством MB или TEOS. a STEM фигуры. b Анализ распределения размера наночастиц. c Si картографирование 10 саморазлагающихся наночастиц. Масштабные линейки во всех фигурах 100 нм. Анализ распределения размера проводился случайным выбором 100 наночастиц из STEM фигур и измерялся программным обеспечением ImageJ. Данные представлены как среднее ± С.К.О.
Эффективность загрузки MB определялась UV-Vis спектром. Стандартная кривая (Рис. S9) MB сначала строилась с использованием сериальных концентраций раствора MB (от 6,25 до 46,88 мкг/мл), с уравнением как y = 67,63x + 0,10919, R2 = 0,9987. Рассчитывая с уравнением выше, мы получали эффективность загрузки MB 10 саморазлагающихся наночастиц с конкретными параметрами, подробные данные показаны на Рис. S10.
Перед изучением профилей высвобождения MB в разных pH растворах, профили высвобождения в чистой воде изучались. Как показано на Рис. S11 и S12, все наночастицы с количеством TEOS 80 мкл представляли увеличенное высвобождение MB с увеличением продолжительности, что отражалось UV-Vis абсорбцией. Более того, с увеличением инкапсулированного количества MB тренд роста высвобождения MB становился более значительным. Также скорость высвобождения росла быстрее. Однако, когда количество TEOS увеличивалось до 100 мкл, поверхность частицы становилась более плотной, и высвобождение замедлялось, когда количество MB ниже 3,0 мг; почти никакой тренда роста не могло быть замечено в высвобождении MB в воде в течение 14 дней высвобождения. Только когда количество MB увеличивалось выше 4,0 мг, явный тренд роста высвобождения MB мог быть замечен. Одна вещь, которую нужно заметить, параметр наночастиц как NPs7.5/80 и NPs6.0/100 представляли твердый рост по мере продления времени, почти показывали линейный тренд роста в течение первых 7 дней, а затем достигали плато.
Затем мы сосредоточились на поведении высвобождения MB в разных pH буферах, чтобы выяснить, могут ли саморазлагающиеся наночастицы с конкретными параметрами иметь линейное pH-зависимое высвобождение MB.
Во-первых, мы провели эксперименты по высвобождению MB в буферном растворе pH 4,0. Из Рис. S13 мы могли легко сделать вывод, что с тем же количеством TEOS 100 мкл скорость высвобождения MB представляла похожий тренд, наблюдался в 5 наночастичных системах TEOS при 80 мкл (Рис. S14), центральная положительная корреляция с инкапсулированным количеством MB.
Концентрированный MB диффузирует в окружающий раствор через диффузию из-за разницы концентраций. Более большой градиент концентрации делает более быстрым высвобождение MB. Сравнивая с высвобождением MB в чистой воде, мы обнаружили, что кислая среда ускоряла высвобождение MB (Рис. S13 и S14 по сравнению с Рис. S11 и S12), указывая на то, что высвобождение MB не только движимо диффузией; однако в кислых растворах электростатическое отталкивание также является важной движущей силой из-за положительной зарядной природы MB. Затем мы рассчитали процент высвобождения каждой наночастичной параметризации согласно эффективности загрузки MB, стандартной кривой MB и коэффициенту разбавления при измерениях. Процент высвобождения отражал скорость высвобождения MB в кислом растворе pH 4,0, и результаты (Рис. 3) показывали, что только процент высвобождения NPs7.5/80 представлял линейное высвобождение в растворе pH 4,0. Другие наночастичные системы с конкретными параметрами MB и TEOS показывали похожие тренды высвобождения, и процент высвобождения не имел линейного роста. Одним исключением были NPs6/100, и высвобождение MB достигало плато всего за 72 ч; таким образом, было трудно сказать, могло ли высвобождение MB расти линейно до этой продолжительности на этом этапе.
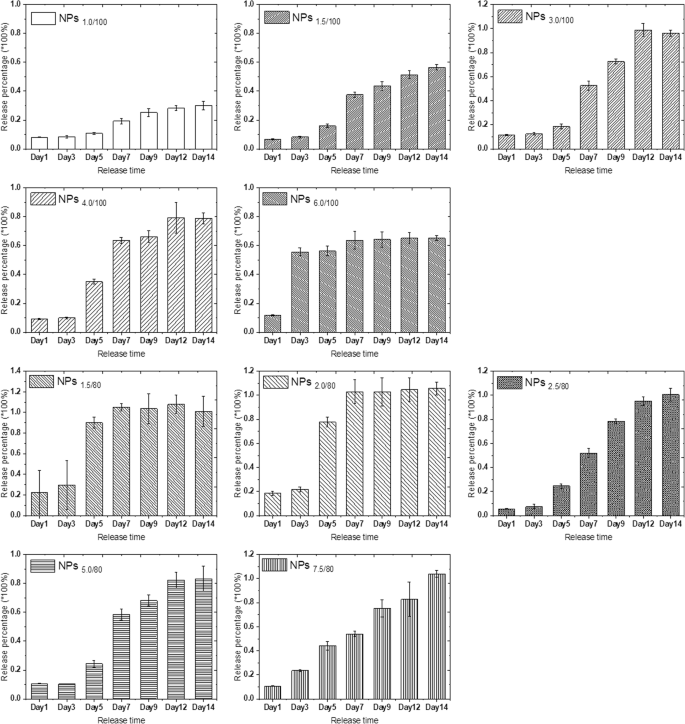
Процент высвобождения MB 10 серийных саморазлагающихся наночастиц после конкретной продолжительности в буфере pH 4,0. Все эксперименты повторялись трижды, и данные показаны как среднее ± С.К.О.
В то же время мы тестировали профили высвобождения MB в близких к нейтральным и щелочных буферах (pH 6,86 и pH 9,18). Результаты как на Рис. S15, S16, Рис. S17 и S18 демонстрировали, что высвобождение MB замедлялось с увеличением pH раствора до 6,86; более того, с увеличением центральной концентрации MB процент высвобождения MB уменьшался. При pH 9,18 все наночастицы с 10 конкретными параметрами представляли очень медленное высвобождение MB (Рис. S19 и S20); неважно в UV-Vis абсорбции или проценте высвобождения, тренд был похож на тот в буфере pH 6,86, но с еще более низким процентом высвобождения. Так что было ясно, что саморазлагающиеся наночастицы представляли линейный рост высвобождения MB только в кислых растворах. Мы вспомнили pH эндо/лизосом, от 4 до 5, что точно является pH диапазоном линейного роста MB как функции времени в конкретном параметре MB/TEOS. Таким образом, мы стали более уверенны, что система саморазлагающихся наночастиц может быть точным измерительным инструментом для количественного определения среднего pH эндо/лизосом, а затем предоставлять доказательства точного значения pH статуса аутофагии.
Предварительное условие использования конкретных саморазлагающихся наночастиц как индикатора pH эндо/лизосом заключается в том, что наночастицы остаются стабильными в эндо/лизосоме в течение всего процесса измерения. Во-вторых, высвобождение MB в эндо/лизосоме должно происходить гладко при проведении измерения.
Колокализация наночастицы в эндо/лизосомах исследованием клеточного TEM и высвобождение MB в 6 разных клеточных линиях изучались. Из результатов клеточного TEM все 10 серийных наночастиц оставались в эндо/лизосомах без побега после 24-часовой инкубации с клетками HepG-2 (Рис. 4). Поскольку диаметр клеток HepG2, используемых на Рис. 4, составляет около 10–20 мкм, а диаметр наночастиц MB@SiO2 находится между 75 и 200 нм, будет очень трудно прояснить морфологии наночастиц, используя изображения с низким увеличением (как показано на Рис. S21). Мы также исследовали внутриклеточное местоположение наночастиц в других 5 клеточных линиях, и 4 наночастицы были случайно выбраны для демонстрации того, что наночастицы были застряны в эндо/лизосомах (Рис. S22). Наночастицы со всеми параметрами показывали центральную полую структуру во всех других 5 клеточных линиях после 24-часовой инкубации, указывая на высвобождение MB. Более того, под более точным наблюдением мы заметили, что высвобождение MB может быть разным из-за разных размеров полостей, указывая на факт, что (1) pH эндо/лизосом в разных клетках разный и (2) высвобождение MB из наночастиц очень чувствительно к pH эндо/лизосом, особенно для NPs6/100 и NPs7.5/80. Из Рис. S23 мы можем найти, что наночастицы уже реализовали эндоцитоз и остались в везикулах через 2 ч после кормления наночастицами, затем наночастицы постепенно накапливались в лизосомах.
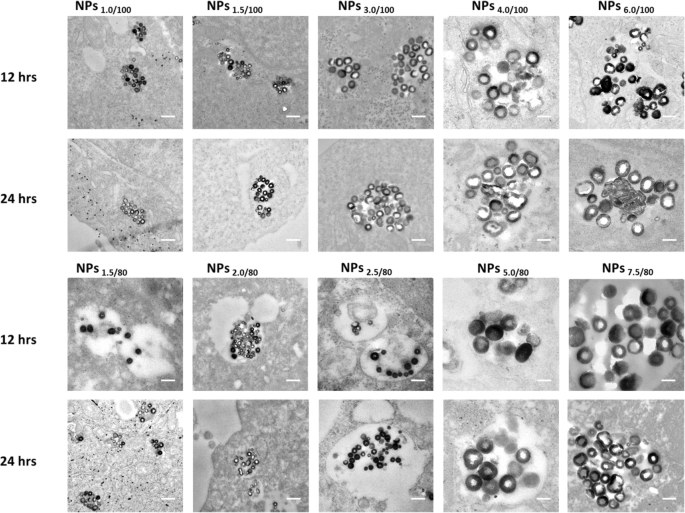
Колокализация наночастицы в эндо/лизосомах исследованием клеточного TEM после 12 и 24 ч инкубации с 10 серийными наночастицами. Масштабная линейка 200 нм в TEM изображениях.
Затем мы оценили корреляцию между значениями pH и значениями OD в pH 4,0–4,8. Из результатов на Рис. 5 и Рис. S24, для наночастичных систем NPs6/100 и NPs7.5/80, высвобождение MB представляло линейное уменьшение как функция pH в pH диапазоне от 4,0 до 4,8.
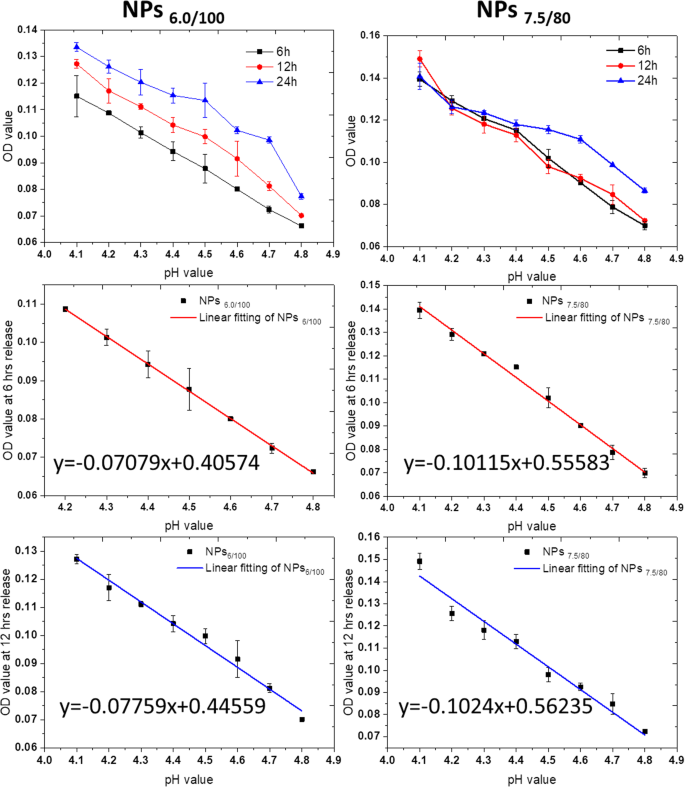
Высвобождение MB как функция pH значений в NPs6/100 и NPs7.5/80 после конкретной продолжительности инкубации, 6 ч, 12 ч и 24 ч. Линейные корреляционные уравнения также рассчитывались для 6 ч и 12 ч для высвобождения MB из обоих NPs6/100 и NPs 7.5/80 как функции pH значений. Все эксперименты проводились в триплекте, и данные показаны как среднее ± С.К.О.
Затем мы конвертировали значение OD в процент высвобождения MB согласно эффективности загрузки MB и количеству кормления. Как показано на Рис. S25, в первые 6 ч процент высвобождения MB в наночастичных системах NPs6/100 и NPs7.5/80 также представлялся как функция значений pH. Затем мы рассчитали остаточную сумму квадратов и коэффициент корреляции Пирсона при 6 ч и 12 ч продолжительности высвобождения соответственно, так как остаточная сумма квадратов представляет отрицательную корреляцию с близостью линейной аппроксимации, в то время как чем ближе абсолютное значение коэффициента корреляции Пирсона к 1, тем более линейным оно является. Как показано в Таблицах S2 и S3, наивысшая степень линейности — аппроксимация наночастичных систем NPs6.0/100, за которой следует NPs7.5/80 при 6 ч высвобождения.
До этого момента мы были так взволнованы результатами, что метод для точного мониторинга значений pH был установлен, особенно с точностью меньше или равной 0,1 интервалу pH. Это означает, что у нас есть большие возможности выяснить корреляцию между значениями pH эндо/лизосом и статусом аутофагии, что имеет большое значение для лучшего изучения механизма аутофагии и предсказания процесса аутофагии. Как мы видим на Рис. S26, высвобождение MB в клетках HepG-2 уже достигло плато после инкубации 4 ч. Таким образом, мы выбрали 6 ч как точку наблюдения.
Затем мы тщательно исследовали высвобождение MB NPs6.0/100 в 6 клеточных линиях в продолжительности взаимодействия наночастицы-клетки 6 ч, включая клеточную линию рака печени HepG-2, клеточные линии рака кишечника HCT8, HCT 15 и HCT 116, клеточную линию рака легких A549 и клеточную линию миомеланоцитарного рака B16.
Как показано в Таблице 2, мы четко дифференцируем эндо/лизосомы в 6 раковых клеточных линиях, с точностью 0,01 значений pH, что невозможно сделать с коммерческими наборами внутриглазных pH индикаторов.
Более того, мы переоценили значения pH в эндо/лизосомах клеток HepG2 до и после культивирования с наночастицами BPSi. Мы пришли к выводу, что поглощение BPSi значительно увеличивает значения pH эндо/лизосом, с 4,70 ± 0,09 до 5,59 ± 0,05, идеально иллюстрируя причину, почему поглощение BPsi индуцировало аутофагию изначально, а затем прекратило аутофагический поток. Внутриклеточное поглощение BPSi делает количества эндо/лизосом увеличенными, что было согласовано с результатами секвенирования генов, что аутофагиа-ассоциированные гены (TFEB-CLEAR) были активированы. В то же время, прекращение аутофагии повышенными значениями pH в эндо/лизосомах также совпадает с результатами урегуляции белков p62 в исследовании Western блота.
Обсуждение
Наночастицы в целом могут вызывать аутофагию в клетках [23], и исследования показали, что аутофагический ответ на наночастицы, представляющие нейтральную или анионную поверхность, включает усиленную очистку аутофагического груза. Клеточное воздействие наночастиц, представляющих катионную поверхность, с другой стороны, приводит к транскрипционной урегуляции пути TFEB, но также вызывает лизосомальную дисфункцию, в конечном итоге приводя к блокировке аутофагического потока [7]. И наши результаты согласуются с этими предыдущими выводами. В нашем исследовании мы обнаружили, что экспрессия аутофагиа-связанных генов и белков в клетках HepG2 увеличилась после кормления наночастицами BPSi через секвенирование транскриптома, RT-qPCR и Western эксперименты. Однако уровень экспрессии аутофагиа-связанного белка P62 не уменьшается по мере активации аутофагии. Мы подозреваем, что PEG-амин на поверхности наночастиц BPSi повышает значение pH лизосомы, приводя к ингибированию деградации P62. Существующие лизосомальные pH индикаторы не могут подтвердить наше предположение. Для точного измерения лизосомального pH живых клеток мы установили новый метод для качественного определения pH эндо/лизосом на основе систем саморазлагающихся наночастиц. Десять наночастичных систем с конкретными параметрами MB/TEOS использовались для получения оптимизированного pH-чувствительного метода измерения. Радиальный градиент концентрации MB изнутри наружу служил основной движущей силой для высвобождения MB. Высвобождение препарата происходило одновременно с разложением носителя, что было движимо диффузионно-контролируемым механизмом. Более того, по мере снижения значения pH концентрация ионов водорода увеличивается, и усиленное электростатическое взаимодействие способствует внутреннему MB высвобождаться быстрее, чем в нейтральном растворе [24]. Оптимизированная центральная полая наночастичная система могла высвобождать центральный концентрированный MB как линейную функцию точных значений pH в диапазоне pH 4,0–4,8, что точно является pH лизосом. Наконец, этим качественным pH-индикатором на основе саморазлагающихся наночастиц мы успешно обнаружили средние значения pH лизосом в 6 клеточных линиях. Более того, этой системой мы можем качественно дифференцировать изменения pH лизосом до и после эндоцитоза наночастиц BPSi клетками HepG-2, проясняя механизм возникновения и затем прекращения аутофагии после эндоцитоза BPSi. Системы саморазлагающихся наночастиц проложили совершенно новый путь для изучения люминальных значений pH, предоставляя новые инструменты для лучшего понимания клеточной сигнализации и метаболизма, а затем предоставляя новые пути и методы для лечения рака [25, 26].
Заключение
В этом исследовании мы обнаружили, что BPSi может способствовать клеточной аутофагии через секвенирование транскриптома, но аминогруппы на поверхности наночастиц могут повышать pH лизосомы и ингибировать деградацию аутофагического потока. Таким образом, лизосомальный pH существенно влияет на стадии аутофагии. И точное получение информации о лизосомальном pH будет способствовать пониманию аутофагии. Однако существующие флуоресцентные лизосомальные pH индикаторы могли определять только широкий диапазон лизосомального pH; таким образом, мы установили точный лизосомальный pH индикатор на основе системы самодиссоциации. Путем настройки параметров синтеза MB@SiO2, высвобождение MB, загруженного на наночастицы, было линейно и отрицательно коррелировано с pH. И наночастицы в основном остаются в лизосоме после входа в клетку. Измеряя количество высвобожденного MB в клетках, значение pH лизосомы может быть рассчитано точно согласно линейной функции. Установленный точный pH индикатор предоставил совершенно новый инструмент и методологию для точного изучения значений лизосомального pH и дальнейшего получения большей информации об аутофагии.
Доступность данных и материалов
Все данные, сгенерированные или проанализированные в течение этого исследования, включены в эту опубликованную статью и ее дополнительные информационные файлы.
Аббревиатуры
- BPSi:
- Черный мезопористый кремний (Black mesoporous silicon)
- FBS:
- Фетальная бычья сыворотка (Fetal bovine serum)
- GO:
- Онтология генов (Gene ontology)
- HCl:
- Соляная кислота (Hydrochloric acid)
- KEGG:
- Киото энциклопедия генов и геномов (Kyoto Encyclopedia of Genes and Genomes)
- MB:
- Метиленовый синий (Methylene blue)
- NaBr:
- Бромид натрия (Sodium bromide)
- NaSi:
- Натриевыйсилицид (Sodium silicide)
- NH4Br:
- Бромид аммония (Ammonium bromide)
- NPs:
- Наночастицы (Nanoparticles)
- OD:
- Оптическая плотность (Optical density)
- PBS:
- Фосфатно-буферный физиологический раствор (Phosphate-buffered saline)
- PDMPO:
- 2-(4-Пиридил)-5-((4-(2-диметиламиноэтил-аминокарбамоил) метокси) фенил) оксазол
- RT-qPCR:
- Обратная транскрипция количественная полимеразная цепная реакция (Reverse transcription quantitative polymerase chain reaction)
- TEOS:
- Тетраэтилортсиликат (Tetraethyl orthosilicate)
Наноматериалы
- Мастерство мониторинга SaaS: Получите полную видимость ваших облачных приложений
- Стеклоткань: инновации, применение и вклад в устойчивое развитие
- Икариин-загруженные mPEG наночастицы: усиленная защита от ЛПС-индуцированной кардиотоксичности в клетках H9c2
- Ультраузкополосный идеальный поглотитель с эффективностью 95% для плазмонного сенсирования в видимом диапаз…
- Дозозависимая токсичность наночастиц диоксида титана для печени, мозга и эмбрионов у мышей
- Al2O3:SiOC нанокомпозиты из фенилтريمоксисилила-модифицированной альлюмины — синтез, структура и фототолумinescenceц…
- Au@TiO₂ ядро-оболочка наноструктуры: адаптированный синтез и их превосходная видимо-световая фото каталитическ…
- Зеленое производство медных наночастиц: каталитические, антибактериальные, цитотоксичные и антиоксидантные…
- Продвинутый TEM/STEM анализ морфологии двух- и трехслойных широкополосных антирефлексных пленок SiO₂
- Пленочные конденсаторы 101: свойства, конструкция и практические применения