



МикроРНК-326-5p защищает нейроны при инсульте: подавление STAT3 уменьшает апоптоз и митохондриальный ущерб
Аннотация
Исследования широко изучали роль микроРНК (миРНК) при церебральной ишемии/реперфузионной травме (ЦИ/РТ). Однако конкретный механизм miR-326-5p при ЦИ/РТ все еще неясен. Следовательно, цель этого исследования — раскрыть механизм оси miR-326-5p/сигнального трандуктора и активатора транскрипции-3 (STAT3) при ЦИ/РТ. Две модели (лишение кислорода и глюкозы [ЛКГ] в первичных корковых нейронах крыс и окклюзия средней мозговой артерии [ОСМА] у крыс Sprague-Dawley) были установлены для имитации ЦИ/РТ in vitro и in vivo соответственно. Потеря- и приобретение-функции анализы выполнялись с ЛКГ-обработанными нейронами и с крысами с ОСМА. После этого жизнеспособность, апоптоз, оксидативный стресс и митохондриальный мембранный потенциал в ЛКГ-обработанных нейронах тестировались, а также патологические изменения, апоптоз и митохондриальный мембранный потенциал в тканях мозга крыс с ОСМА. Экспрессия Митофузина-2 (Mfn2), miR-326-5p и STAT3 в ЛКГ-обработанных нейронах и в тканях мозга крыс с ОСМА определялась. Mfn2 и miR-326-5p были снижены, а STAT3 повышен в ЛКГ-обработанных нейронах и тканях мозга крыс с ОСМА. miR-326-5p таргетировала и негативно регулировала экспрессию STAT3. Восстановление miR-326-5p или снижение STAT3 усилили жизнеспособность, inhibировали апоптоз и оксидативный стресс, увеличили митохондриальный мембранный потенциал и увеличили экспрессию Mfn2 в ЛКГ-обработанных нейронах. Уpregulation miR-326-5p или down-regulation STAT3 облегчили патологические изменения, inhibировали апоптоз и повысили митохондриальный мембранный потенциал и экспрессию Mfn2 в тканях мозга крыс с ОСМА. Это исследование разъясняет, что up-regулированная miR-326-5p или down-regулированная STAT3 защищает от ЦИ/РТ путем повышения экспрессии Mfn2.
Введение
Церебральная ишемия/реперфузионная травма (ЦИ/РТ) — это вид мозговой травмы, следующей за ишемическим инсультом [1]. Наиболее характерная черта церебральной I/R — это начальная транзиторная церебральная ишемия, за которой следует реперфузия [2]. ЦИ/РТ активирует нейронный апоптоз и приводит к гиппокампальному и корковому повреждению [3]. В настоящее время наиболее распространенным клиническим применением является тромболитик для ЦИ/РТ [4]. Однако реперфузия увеличивает производство реактивных форм кислорода (РФК), что приводит к внутриклеточному повреждению ДНК, оксидативному стресс-связанному повреждению, окислению белков и перекисному окислению липидов, тем самым дальше ухудшая гематоэнцефалический барьер и отек [5]. Таким образом, срочность поиска новых целевых вариантов лечения ставится на приоритет для ЦИ/РТ.
МикроРНК (миРНК) широко рассматриваются как потенциальные и прогностические роли при ЦИ/РТ [6, 7]. Например, статья продемонстрировала, что miR-202-5p ослабляет нейронное повреждение и неврологические дефициты, а также повреждение клеток, индуцированное ЛКГ, у крыс с моделью ОСМА при ишемической травме [8]. Кроме того, было найдено, что up-regуляция miR-98 улучшает неврологические исходы у мышей с I/R инсультом [9] и overexпрессия miR-451 облегчает ишемический церебральный апоптоз у мышей с ЦИ/РТ [10]. Конкретно, miR-326-5p имеет про-ангиогенную способность для эндотелиальных предшественнических клеток и может улучшить сердечную функцию после острого инфаркта миокарда [11]. Однако исследование, фокусирующееся на miR-326-5p при ЦИ/РТ, все еще в зачаточном состоянии. Сигнальные трандукторы и транскрипционные активаторы (STAT) — уникальная семья белков, активируемая ЦИ/РТ [12]. STAT3 был предсказан как мишень miR-326-5p на биоинформатическом веб-сайте; таким образом, мы изучили роль miR-326-5p-медиациированного STAT3 при ЦИ/РТ. STAT3 ухудшает ишемические нейро-инflammаторные процессы и вторичную мозговую травму за счет выделения про-инflammаторных медиаторов [13, 14]. Конкретно, путь Janus-активированной киназы 2 (JAK2)/STAT3 играет функциональную роль в блокировке апоптоза клетки, индуцированного ЦИ/РТ [15]. Митофузин-2 (Mfn2) — это митохондриальный фактор слияния, который может защищать от кардио-цереброваскулярной I/Р травмы [16] и улучшать гипоксию-индуцированный нейронный апоптоз при ишемическом повреждении мозга [17]. Также было зафиксировано, что Mfn2 оказывает защитный эффект на ЦИ/РТ [18].
В 한마디, менее глубокое исследование обнаружило комбинированную роль miR-326-5p и STAT3 при ЦИ/РТ. Учитывая это, данное исследование запущено с гипотезой, что miR-326-5p ослабляет ЦИ/РТ через таргетирование STAT3.
Материалы и методы
Этическое заявление
Эксперименты были одобрены Комитетом по уходу и использованию животных Аффилированной больницы Янчжоуского университета; Янчжоуский университет, и проводились в соответствии с Руководством по уходу и использованию экспериментальных крыс Аффилированной больницы Янчжоуского университета; Янчжоуский университет.
Экспериментальные животные
Взрослые самцы крыс Sprague-Dawley (6–8 недель, 250 ± 30 г) из Центра сравнительной медицины Янчжоуского университета (Янчжоу, Китай) содержались в специфически патоген-свободной среде с свободным доступом к еде и воде, (24 ± 1)°C, (50 ± 5)% влажность и 12-часовой световой/темновой цикл.
Изоляция и идентификация клеток
Крысы эвтаназировали декапитацией, а их мозги разрезали на 1 мм³ для получения клеточных суспензий, которые смешивались с 0,4% раствором трипан-синего в соотношении 9:1 (конечная концентрация трипан-синего 0,04%) и плотность клеток и выживаемость рассчитывались в счетчике Гориаэва. Клетки (1 × 10⁶ клеток/мл) посевали в колбу для клеточной культуры, предварительно покрытую L-полилизином (0,1 мг/мл) по 5 × 10⁶ клеток на колбу. Когда клетки прикреплялись к стенкам, их инкубировали с обновленной средой (NeurobasalA + B27 + L-глутамин) и продолжали культивировать 6–7 дней со сменой половины среды каждые 2–3 дня.
Идентификация клеток: Кресточные нейроны крыс использовались для приготовления нейронных препаратов, которые инкубировали с первичным поликлональным антителом кролика против Nestin (NES) крысы (1:200), а также флуоресциinisothiocyanate (FITC)-маркированным козьим антителом против кроличьего иммуноглобулина G (1:50, оба от Cell Signaling Technology, Beverly, MA, США). После этого клетки герметизировали анти-флуоресцентным кенчером и наблюдали флуоресцентной микроскопией.
Установка модели ЛКГ
Нейроны культивировали в безглюкозном растворе Эрла и воздействовали смесью газа 95% N₂ и 5% CO₂. После 30 мин положительной вентиляции под давлением формировалась гипоксическая среда, в которой клетки инкубировали (имитация ишемии ЛКГ in vitro). После 90 мин инкубации клетки инкубировали с поддерживающей клеточной средой после удаления безглюкозного раствора Эрла. Клетки рутинно культивировали для последующих экспериментов (имитация реперфузии кислородно-глюкозной реперфузией in vitro). Нормальная среда под нормоксией служила контролем.
Нейроны делили на контрольную группу; группу ЛКГ, группу негативного контроля (НК) (ЛКГ-обработанные нейроны, трансфектированные скрэмбл-олигонуклеотидами), группу miR-326-5p агомир (ЛКГ-обработанные нейроны, трансфектированные miR-326-5p агомиром), группу sh-STAT3 (ЛКГ-обработанные нейроны, трансфектированные shRNA STAT3) и группу miR-326-5p агомир + overexпрессия (oe)-STAT3 (ЛКГ-обработанные нейроны, трансфектированные miR-326-5p агомиром и вектором pcDNA-STAT3). Олигонуклеотиды и векторы все предоставлены GenePharma (Шанхай, Китай).
Используя липофектамин 2000 (Invitrogen; Thermo Fisher Scientific), скрэмбл-олигонуклеотиды, miR-326-5p агомир, shRNA STAT3 или miR-326-5p агомир и pcDNA-STAT3 трансфектировали в первичные крысьи нейроны, а эффективность трансфекции тестировала обратной транскрипцией количественной полимеразной цепной реакцией (RT-qPCR) или вестерн-блотом после 48 ч.
MTT-анализ
Нейроны делали суспензией при 1 × 10⁶ клеток/мл и культивировали 0, 24 и 48 ч соответственно. В стерильной среде нейроны инкубировали 2–4 ч в 10% растворе MTT и добавляли 150 мкл раствора Формазана (Диметилсульфоксид) до полного растворения кристаллов. Оптическая плотность (OD) измерялась на микроплитном считывателе при 570 нм.
Анализ апоптоза цитометрией потока
Нейроны отделяли 0,25% трипсином, центрифугировали при 2000 об/мин и ресуспендировали в PBS. Затем нейроны центрифугировали при 2000 об/мин, и осадок ресуспендировали связующим буфером и последовательно инкубировали с 5 мкл Annexin V-FITC и 5 мкл йодида пропидия (PI). Цитометр потока применяли для определения скорости апоптоза.
Определение митохондриального мембранного потенциала JC-1
Клетки в 6-колбовой пластине промывали PBS, добавляли 1 мл клеточной среды и 1 мл рабочего раствора окраски JC-1 (50 мкл JC-1, 8 мл ультрачистой воды и 2 мл буфера окраски JC-1) (SolarbioScience, Пекин, Китай) и инкубировали 15 мин. 1× буфер окраски JC-1 конфигурировали из 4 мл дистиллированной воды и 1 мл буфера окраски JC-1. После инкубации клетки трипсинизировали, ресуспендировали в буфере JC-1 и тестировали на цитометре потока. Относительная доля зеленой флуоресценции рассчитывалась.
Обнаружение оксидативного стресса
Внутриклеточные уровни РФК измеряли комплектом обнаружения 2,7-дихлорофлуоресцеин диацетата (DCF-DA) (Abcam). Кратко, нейроны отделяли 0,25% трипсином, ресуспендировали и инкубировали с 10 мкМ DCF-DA в течение 30 мин. После этого флуоресценция DCF с возбуждением/эмиссией света при 495 нм/529 нм измерялась флуоресцентной спектроскопией (BD Biosciences).
Обнаружение внутриклеточного малондиальдегида (MDA), глутатиона (GSH) и активности супероксиддисмутазы (SOD) выполнялось химической колориметрией с использованием коммерческих аналитических комплектов (Beyotime Biotechnology Co., Шанхай, Китай). OD значение измерялось микроплитным считывателем.
Установка модели крысы
Крысы анестезировали внутрибрюшным введением натриевого пентобарбитала (50 мкг/кг). Делали срединный надрез на шее, связывали внешнюю сонную артерию и пережимали общую сонную артерию артериальным зажимом. 3-0 силиконовым монофиламентным нейлоновым швом аккуратно вводили во внутреннюю сонную артерию до легкого сопротивления. После 90 мин транзиторной церебральной ишемии шов выводили, и реперфузия выполнялась еще 24 ч. Шам-группа получала то же лечение, за исключением того, что шов не входил во внутреннюю сонную артерию. Во время операции термостатируемая кровать использовалась для поддержания ректальной температуры при 37 ± 0,5 °C [19].
Крысы распределяли на 6 групп (n = 6) и инъектировали плазмиду или miR в латеральный мозжечковый желудочек перед установкой моделей ОСМА, включая шам-группу, группу ОСМА (моделированные крысы), группу НК (моделированные крысы с латеральным желудочечным введением 5 мкл скрэмбл-олигонуклеотидов [100 мкМ]), группу miR-326-5p агомир (моделированные крысы с латеральным желудочечным введением 5 мкл miR-326-5p агомир [100 мкМ]), группу sh-STAT3 (моделированные крысы с латеральным желудочечным введением 5 мкл вектора интерференции STAT3 [100 мкМ]) и группу miR-326-5p агомир + oe-STAT3 (моделированные крысы с латеральным желудочечным введением 5 мкл miR-326-5p агомир [100 мкМ] и 5 мкл вектора overexпрессии STAT3 [100 мкМ]) [20, 21].
Сбор образцов
Крысы эвтаназировали анестезией, сердца перфузировали, и целые мозги извлекали. Поврежденные мозговые ткани резали на 1 × 1 × 1 мм³ тканевые массы для приготовления парафиновых срезов, RT-qPCR, вестерн-блот анализа и определения митохондриального мембранного потенциала.
Определение митохондриального мембранного потенциала в корке мозга
Мозговая кора крыс SD отделяли и резали на 1 мм³. Тканевые блоки клали на нейлоновую сетку 300 ячеек и добавляли PBS. Затем клеточная суспензия центрифугировалась при 1000 об/мин, добавляли 70% этанол и снова центрифугировали при 1000 об/мин. После этого образец ресуспендировали в 1 мл PBS, и суспензия (1 × 10⁶ клеток, 100 мкл) реагировала с раствором красителя Rhodamine123 (10 мкл, 5 мкг/мл) и анализировалась на цитометре потока при 488 нм.
ГЕ окраска
Крысья мозговая ткань помещали в 4% параформальдегид на 24 ч, и приготовляли парафиновые срезы, резали на 4 мкм, распределяли в воде 40 °C и сушили при 60 °C. Рутинно депарафинизировали и гидратировали, парафиновые срезы окрашивали раствором ГЕ. После ГЕ окраски поврежденные нейроны показывали сокращение ядра, клеточный отек, вакуолизацию и потемнение ядер. Световой микроскоп (Nikon, Япония) использовали для получения изображения, и количество выживших нейронов (мм²) ишемической коры считалось.
TUNEL окраска
Парафиновые срезы депарафинизировали и дегидратировали 100%, 95%, 80% и 70% спиртом. Затем срезы помещали в 4% параформальдегид, за чем следовала инкубация с 0,1% Тритон X-100 натриевым цитратным буфером 20 мин и TUNEL реакционной смесью 1–1,5 ч. Затем срезы развивали пероксидазным раствором и диаминобензидином (DAB), контрасточным окрашивали гемاتоксилином, дегидратировали градиентным спиртом, пермеабилизировали и герметизировали в нейтральном камеде. Срезы наблюдали под световым микроскопом для подсчета TUNEL-позитивных клеток. Коричневато-желтые частицы в ядре определялись как TUNEL-позитивные клетки (апоптотические клетки).
Иммуностохимия
Срезы депарафинизировали, гидратировали и извлекали цитратным антигеном, и эндогенная каталаза блокировалась 3% H₂O₂. Каждой срезе добавляли козью сыворотку (50 мкл), инкубировали с первичным антителом (50 мкл) и реагировали со вторичным антителом (50 мкл) и пероксидазой-маркированным стрептavidином (50 мкл). Срезы развивали DAB и контрасточным окрашивали гематоксилином, за чем следовала градиентная спиртовая дегидратация, ксиленовая пермеабилизация и нейтральное камедирование герметизации. Срезы наблюдали микроскопом (цитоплазма или ядро ишемических мозговых тканей были желтыми или коричневато-желтыми частицами). OD значения измерялись и усреднялись.
RT-qPCR
Общая экстракция РНК из тканей и клеток выполнялась Тризолом (Invitrogen). Экспрессия мРНК анализировалась через qPCR с использованием SYBR Green PCR Mix (Applied Biosystems, CA, США) и QuantStudio TM 6Flex real-time PCR системы (Applied Biosystems). Специфические стеблевидные обратные транскрипционные праймеры и прямые/обратные праймеры (BioTNT, Шанхай, Китай) проектировались для анализа уровней миРНК. Таблица 1 перечислила все праймеры. Метод 2⁻ΔΔCt принимался для расчета уровней миРНК или мРНК.
Вестерн-блот анализ
Белковые образцы разделяли 10% натрий-додецил-сульфат полиакриламидной гель-электрофорезой и электрофоретски переносили на поливинилиденфторидную (PVDF) мембрану. После этого PVDF мембрана блокировалась 5% обезжиренным сухим молоком в трис-содержащей соляной среде, пробовалась первичными антителами и повторно пробовалась вторичным антителом 2 ч. Затем белковые полосы анализировали щелочным фосфатазным буфером, содержащим нитроблу тетразолиевый хлорид и 5-бром-4-хлор-3-индотил фосфат и квантифицировали программой ImageJ (NIH, Bethesda, MD, США). Основные антитела были STAT3 (1:1000), Mfn2 (1:1000, Abcam, MA, США) и глицеральдегид-3-фосфат дегидрогеназа (GAPDH) (1:1000, Cell Signaling Technology, Beverly, MA, США).
Анализ двойного люциферазного репортерного гена
3'UTR STAT3, содержащий дикое-типовое (WT) или мутантное (Mut) место связи miR-326-5p, клонировали в вектор pmirGLO (Promega, WI, США), назвали STAT3-WT и STAT3-Mut. Клетки посевали в 24-колбовую пластину при 2 × 10⁴ клеток/колба и ко-трансфектировали 100 нг STAT3-WT или STAT3-Mut люциферазного вектора и 50 нМ miR-326-5p агомир или его агомир НК при 70% конфлюенции. Люциферазная активность измерялась системой анализа двойного люциферазного репортера (Promega Corporation, WI, США).
Статистический анализ
Статистическое программное обеспечение SPSS 21.0 (IBM, NY, США) использовалось для анализа данных. Данные выражались как среднее ± стандартное отклонение (SD). Разница между двумя группами анализировалась t-тестом Стьюдента, в то время как множественные сравнения анализировались односторонним дисперсионным анализом (ANOVA), за которым следовал пост-хок тест Тьюки. P представлял двусторонний тест, и P < 0,05 считалось статистически значимым.
Результаты
Up-regуляция miR-326-5p или Down-regуляция STAT3 ослабляет апоптоз ЛКГ-обработанных корковых нейронов
Культивированные на протяжении недели, крысьи корковые нейроны были дифференцированы и зрели. Микроскопически нейроны показывали более крупные нейронные тела, более прозрачный цитоплазма, большой ядро с низкой плотностью и сильный рефрактивный индекс. Нейронные тела были коническими или круглыми, а дендриты были застаривающимися и прикреплялись к стенкам (Рис. 1a, b). NES был специфическим химическим маркером церебральных нейронов для локализации нейронов с высокой специфичностью через иммунофлуоресцентный анализ. Нейроны находили, что специфически связывались с NES и показывали зеленую флуоресценцию (Рис. 1c).
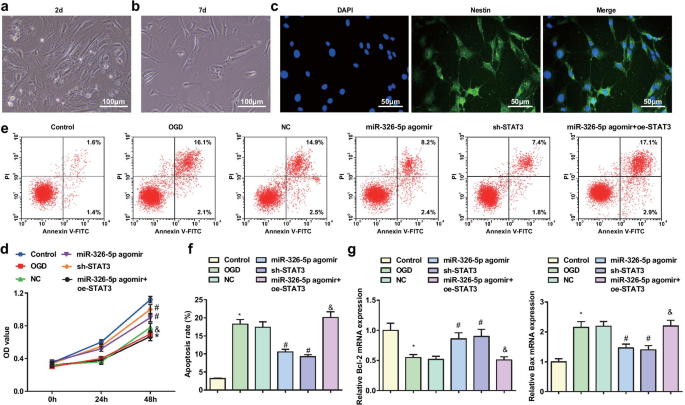
MTT-анализ применяли для определения жизнеспособности корковых нейронов (Рис. 1d). Результаты продемонстрировали, что жизнеспособность крысьих корковых нейронов была нарушена в группе ЛКГ и группе miR-326-5p агомир + oe-STAT3 по сравнению с контрольной группой и группой miR-326-5p агомир, но усилена в группе miR-326-5p агомир и sh-STAT3 по сравнению с группой НК (все P < 0,05).
Апоптоз крысьих корковых нейронов определяли цитометрией потока, в то время как экспрессия мРНК Bcl-2 и Bax — RT-qPCR (Рис. 1e–g). Результаты объяснили, что в сравнении с контрольной группой и группой miR-326-5p агомир, группа ЛКГ и группа miR-326-5p агомир + oe-STAT3 продемонстрировали увеличенную скорость апоптоза, сниженную экспрессию Bcl-2 и повышенную экспрессию Bax (все P < 0,05). В противовес группам НК, скорость апоптоза была снижена, уровень Bcl-2 повышен и уровень Bax подавлен в группе miR-326-5p агомир и sh-STAT3 (все P < 0,05).
Up-regуляция miR-326-5p или Down-regуляция STAT3 увеличивает Mfn2 и уровень митохондриального мембранного потенциала в корковых нейронах после ЛКГ травмы
Экспрессия Mfn2 в ЛКГ-обработанных корковых нейронах определялась вестерн-блот анализом (Рис. 2a, b). Относительно контрольной группы и группы miR-326-5p агомир, белковая экспрессия Mfn2 снижалась в группе ЛКГ и группе miR-326-5p агомир + oe-STAT3, в то время как увеличивалась в группе miR-326-5p агомир и sh-STAT3 по сравнению с группой НК (все P < 0,05).
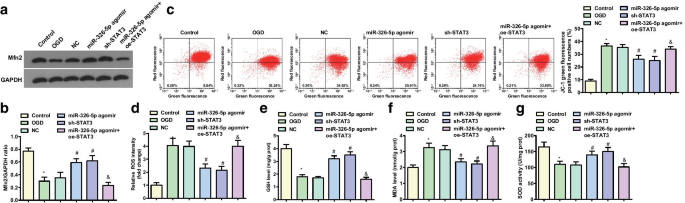
Митохондриальный мембранный потенциал, обнаруженный JC-1, показал, что (Рис. 2c, d) относительно контрольной группы и группы miR-326-5p агомир, уровень митохондриального мембранного потенциала снижался в группе ЛКГ и группе miR-326-5p агомир + oe-STAT3 (все P < 0,05). Относительно групп НК, уровень митохондриального мембранного потенциала увеличивался в группе miR-326-5p агомир и sh-STAT3 (все P < 0,05).
РФК и MDA содержание, а также GSH и SOD активность в ЛКГ-обработанных корковых нейронах определяли и результаты указывали на то, что по сравнению с контрольной группой и группой miR-326-5p агомир, группа ЛКГ и группа miR-326-5p агомир + oe-STAT3 представили увеличенные РФК и MDA содержание и нарушенные GSH и SOD активность (все P < 0,05). В сравнении с группами НК, группа miR-326-5p агомир и sh-STAT3 показали сниженные РФК и MDA содержание и усиленные GSH и SOD активность (все P < 0,05) (Рис. 2e–g).
Up-regуляция miR-326-5p или Down-regуляция STAT3 препятствует патологическому повреждению корковых нейронов и inhibирует апоптоз у крыс с ЦИ/РТ
ГЕ окраска применялась для наблюдения патологического повреждения мозговых тканей (Рис. 3a, b), показывая, что в шам-группе нейроны были нормальны в структуре и аккуратно расположены с бледно-красным цитоплазмом, синим ядром и ясным нуклеолом. В группе ОСМА, группе НК и группе miR-326-5p агомир + oe-STAT3, кроме некроза, наблюдалось, что нейроны были беспорядочно расположены и окрашены темнее, с разрывом ядерной оболочки, исчезновением клеточной структуры, кариопикнозом, глубоко окрашенным ядром и лизисом в большом количестве. В группе miR-326-5p агомир и sh-STAT3 отек нейронов был облегчен и нейроны были расположены упорядоченно, а некротические клетки были снижены, указывая на лучший статус по отношению к группе ОСМА и группе НК.
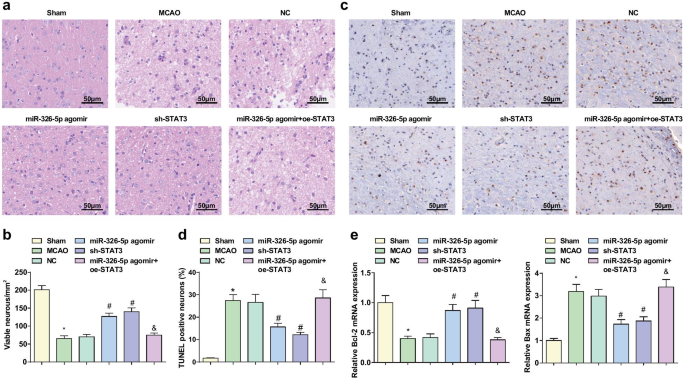
TUNEL окраска использовалась для обнаружения нейронного апоптоза и RT-qPCR для экспрессии мРНК Bcl-2 и Bax в мозговых тканях. Результаты отображали, что (Рис. 3c–e) в сравнении с шам-группой и группой miR-326-5p агомир, TUNEL-позитивная скорость увеличивалась, экспрессия мРНК Bcl-2 снижалась и экспрессия мРНК Bax увеличивалась в группе ОСМА и группе miR-326-5p агомир + oe-STAT3 (все P < 0,05). Ниже TUNEL-позитивная скорость и экспрессия мРНК Bax, и выше экспрессия мРНК Bcl-2 показывали в группе miR-326-5p агомир и sh-STAT3 чем группа НК (все P < 0,05).
Up-regуляция miR-326-5p или Down-regуляция STAT3 увеличивает уровень митохондриального мембранного потенциала в мозговых тканях у крыс с ЦИ/РТ
Обнаружение белковой экспрессии Mfn2 в крысьей мозговой ткани выполнялось иммуностохимией, и результаты показывали, что (Рис. 4a, b) более низкая белковая экспрессия Mfn2 тестировалась в шам-группе и группе miR-326-5p агомир по сравнению с группой ОСМА и группой miR-326-5p агомир + oe-STAT3, в то время как более высокая белковая экспрессия Mfn2 измерялась в группе miR-326-5p агомир и sh-STAT3 вместо группы НК (все P < 0,05).
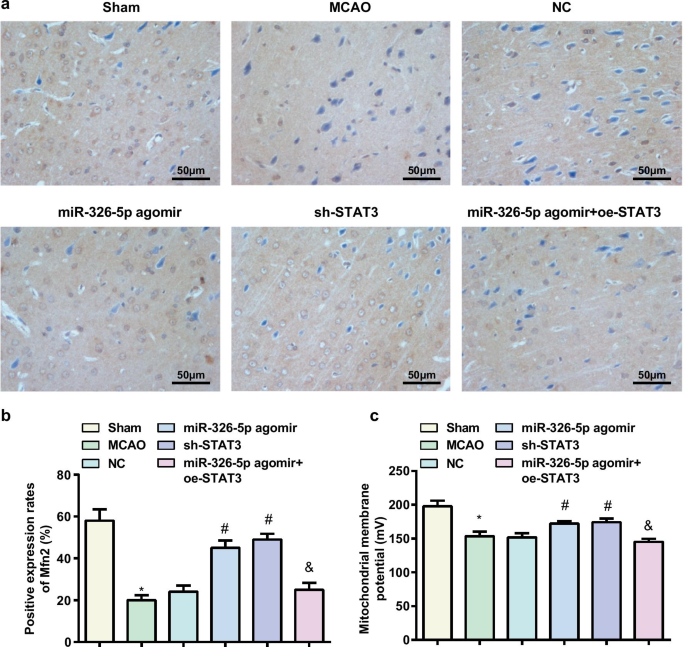
Обнаружение уровня митохондриального мембранного потенциала обнаружило, что (Рис. 4c) в сравнении с шам-группой и группой miR-326-5p агомир, уровень митохондриального мембранного потенциала снижался в группе ОСМА и группе miR-326-5p агомир + oe-STAT3, в то время как увеличивался в группе miR-326-5p агомир и sh-STAT3 в противовес группе НК (все P < 0,05).
miR-326-5p таргетирует STAT3
Экспрессия miR-326-5p и STAT3 в корковых нейронах и мозговых тканях определялась RT-qPCR и вестерн-блот анализом. В корковых нейронах in vitro, снижение предполагалось в экспрессии miR-326-5p и увеличение в экспрессии STAT3 в группе ЛКГ относительно контрольной группы (оба P < 0,05). Относительно группы НК, экспрессия miR-326-5p повышалась и экспрессия STAT3 снижалась в группе miR-326-5p агомир (оба P < 0,05); экспрессия STAT3 снижалась (P < 0,05) в группе sh-STAT3. В противовес группе miR-326-5p агомир, экспрессия STAT3 повышалась в группе miR-326-5p агомир + oe-STAT3 (P < 0,05) (Рис. 5a–c).
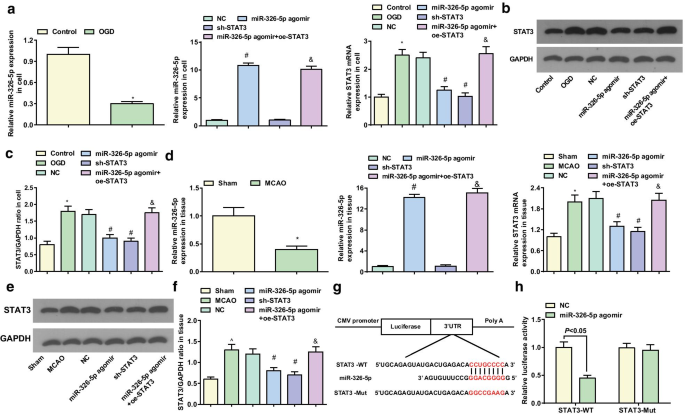
В мозговых тканях in vivo, в отношении шам-группы, более низкая miR-326-5p и более высокая STAT3 появлялись в группе ОСМА (оба P < 0,05). Относительно группы НК, экспрессия miR-326-5p повышалась, в то время как экспрессия STAT3 снижалась в группе miR-326-5p агомир (оба P < 0,05). Экспрессия STAT3 снижалась в группе sh-STAT3 (P < 0,05). С группой miR-326-5p агомир по контрасту, экспрессия STAT3 повышалась в группе miR-326-5p агомир + oe-STAT3 (P < 0,05) (Рис. 5d–f).
Потенциальные места таргетирования miR-326-5p на 3'UTR STAT3 находили программным обеспечением DIANA и miRDB (Рис. 5g). 3'UTR STAT3, содержащий WT место связи miR-326-5p и Mut место связи, конструировали и вставляли в плазмиду pmirGLO. Связывание miR-326-5p с 3'UTR STAT3 дополнительно подтверждалось люциферазным репортерным анализом. Люциферазный репортерный анализ раскрыл, что miR-326-5p агомир снижал относительную люциферазную активность STAT3-WT, но не STAT3-Mut (Рис. 5h), подразумевая, что STAT3 был прямым целевым геном miR-326-5p.
Обсуждение
ЦИ/РТ является ведущей причиной цереброваскулярной смертности [22]. МиРНК указывают на вовлеченность в ЦИ/РТ [23]. Однако всестороннее понимание механизма, связанного с miR-326-5p, все еще недостаточно при ЦИ/РТ. Таким образом, данное исследование направлено на раскрытие конкретных ролей miR-326-5p при ЦИ/РТ с акцентом на комбинированное взаимное действие miR-326-5p и STAT3. Продуктивно, данное исследование заявило, что up-regуляция miR-326-5p ослабляет ЦИ/РТ и повышает экспрессию Mfn2 через ингибирование STAT3.
В начале, экспрессия miR-326-5p определялась сниженной при ЦИ/РТ in vivo и in vitro. Последовательно, мы устроили серию анализов и обнаружили, что up-regуляция miR-326-5p усилила жизнеспособность нейронов и митохондриальную функцию, повысила экспрессию Mfn2 и сдерживала оксидативный стресс и апоптоз. Более того, in vivo эксперименты на крысах дополнительно подтвердили функциональные роли восстановленной miR-326-5p при ЦИ/РТ. Как مسألة факта, высокий miR-326 доказан коррелирующим с длительной общей выживаемостью пациентов с глиобластомой, распространенным типом мозговой опухоли [24]. Также экспрессия miR-326 была дополнительно доказана сниженной при болезни Паркинсона и miR-326 мог подавлять апоптоз дофаминергических нейронов и снижать инflammаторный ответ [25]. За исключением того, снижение miR-326-5p проявляется в эндотелиальных предшественнических клетках в ходе инфаркта миокарда, и введение эндотелиальных предшественнических клеток overexпрессирующих могло способствовать восстановлению сердечной функции [11]. Существует исследование, иллюстрирующее, что up-regуляция miR-326 улучшает поведенческую функцию, усиливает нейронную жизнеспособность и подавляет нейронный апоптоз у мышей с болезнью Альцгеймера [26]. Более того, документировано, что up-regуляция miR-326 miR-326 мимиком может подавлять индуцируемую оксид азота синтазу в дофаминергических нейронах при болезни Паркинсона [27].
В данном исследовании мы обнаружили, что STAT3 был целевым геном miR-326-5p. Поддерживаемое передовым исследованием, указывается, что экспрессия STAT3 негативно регулируется miR-326 в стволовых клетках человечного эндометриального карциномы [28]. В настоящем исследовании мы измерили, что экспрессия STAT3 была усилена при ЦИ/РТ. В настоящее время было найдено, что I/R травма и ЛКГ индуцируют увеличение экспрессии STAT3 [29]. Интригующе, мРНК экспрессия STAT3 трендует к инкременту у животных с I/R [30]. Дополнительно, белковая экспрессия STAT3 сообщается up-regулированной при ЦИ/РТ [31]. Далее, наше исследование раскрыло, что down-regуляция STAT3 имела терапевтические эффекты на крыс с ЦИ/РТ и ЛКГ-обработанные нейроны. Как поддерживаемое исследованием, заключается, что индукция miR-31 препятствует оксидативному стрессу путем инактивации JAK/STAT3 пути при ишемическом инсульте [32]. Также ингибирование JAK2/STAT3 пути полезно для нарушения оксидативного стресса при ЦИ/РТ [31]. Более того, нокаут JAK/STAT3 пути идентифицирован как усиливающий жизнеспособность клетки и снижающий оксидативный стресс и нейронный апоптоз при ишемической мозговой травме [33]. Недавно ингибированный JAK/STAT3 сигнальный путь свидетельствовал облегчение инфаркта миокарда при миокардиальной I/R травме [34]. Как продемонстрировано, истощенный STAT3 подрывает нейронный апоптоз у крыс с повреждением белого вещества [35]. Более того, подавление нейронного апоптоза и облегчение размера церебрального инфаркта атрибутируются ингибированию JAK2/STAT3 у крыс с ЦИ/РТ [36].
Наконец, мы сфокусировались на эффектах miR-326-5p и STAT3 на экспрессию Mfn2 и обнаружили, что сниженный уровень Mfn2 у крыс с ЦИ/РТ и ЛКГ-обработанных нейронов мог быть повышен либо восстановлением miR-326-5p, либо沉默 STAT3. Как подразумеваемое предыдущим исследованием, документировано, что Mfn2 снижен в поздней фазе реперфузии и плохо экспрессированный Mfn2 усугубляет ЦИ/РТ через сдерживание формирования аутофагосом и слияния аутофагосом и лизосомы [18]. Дополнительно, Mfn2 подразумевается сниженным даже исчезающим при I/R травме в старых гепатоцитах [37]. Однако мало исследований обсуждали регуляторный механизм miR-326-5p и STAT3 для Mfn2.
Заключение
В общем, данное исследование разъяснило механизмы, что повышенная miR-326-5p inhibирует нейронный апоптоз, ослабляет патологическое повреждение нейронов и увеличивает экспрессию Mfn2 через down-regуляцию STAT3 при ЦИ/РТ. Исследование может обновить потенциальный механизм miR-326-5p и STAT3 при ЦИ/РТ. Однако более глубокие исследования все еще необходимы для дальнейшего развития молекулярного механизма при ЦИ/РТ.
Доступность данных и материалов
Не применимо.
Аббревиатуры
- miRNAs:
- МикроРНК
- STAT3:
- Сигнальный трандуктор и активатор транскрипции-3
- OGD:
- Лишение кислорода и глюкозы
- MCAO:
- Окклюзия средней мозговой артерии
- ROS:
- Реактивные формы кислорода
- STAT:
- Сигнальные трандукторы и транскрипционные активаторы
- Mfn2:
- Митофузин-2
- FITC:
- Флуоресциinisothiocyanate
- NES:
- Нестин
- NC:
- Негативный контроль
- Oe:
- Overexпрессия
- RT-qPCR:
- Обратная транскрипция количественная полимеразная цепная реакция
- OD:
- Оптическая плотность
- PI:
- Йодид пропидия
- MDA:
- Малондиальдегид
- GSH:
- Глутатион
- SOD:
- Супероксиддисмутаза
- DAB:
- Диаминобензидин
- PVDF:
- Поливинилиденфторид
- WT:
- Дикий тип
- Mut:
- Мутант
- SD:
- Стандартное отклонение
- ANOVA:
- Односторонний дисперсионный анализ
Наноматериалы
- Пожарные ущерб и предотвращение: экспертные стратегии защиты жизней и имущества
- Блокировка оси miR-342-5p/Wnt3a стабилизирует атеросклеротические бляшки и подавляет ангиогенез у мышей ApoE−/−
- Икариин-загруженные mPEG наночастицы: усиленная защита от ЛПС-индуцированной кардиотоксичности в клетках H9c2
- Целлюлоза-POSS-Силица/Золото ядро-оболочка гибридные нанокомпозиты: одношаговый соль-гелевый синтез и мультиф…
- PEGилированные липосомы повышают растворимость, фармакокинетику и цитотоксичность буфалина по отношению к гл…
- Легко синтезируемые червоточинообразные мезопористые SnO₂ через испарение-индуцированную самоорганизацию: п…
- Настройка рабочей функции графена через размер, функционализацию, дефекты и легирование: из первых принципов
- Редокс-реактивные двойной-нацеленные наночастицы для доставки куркумина в митохондрии CD44-позитивных опухол…
- Мембрана натрия альгината – сульфонированного оксида графена: высокая протонная проводимость и низкая прони…
- Яркие флуоресцентные углеродные квантовые точки из лимонного сока: гидротермальный синтез и оптическая хара…