



Как многослойные углеродные нанотрубки стимулируют развитие боковых корней томата через сигнализацию оксида азота
Аннотация
Множество исследований показали, что многослойные углеродные нанотрубки (МСУНТ) токсичны для растений. Однако, влияют ли или как МСУНТ влияют на формирование боковых корней (БК), которое является важным компонентом адаптивности корневой системы к различным экологическим сигналам, остается спорным. В этом отчете мы обнаружили, что МСУНТ могут проникать в корни рассады томата. Введение МСУНТ стимулировало формирование БК томата примерно дозозависимым образом. Эндогенное производство оксида азота (NO) индуцировалось МСУНТ, подтвержденное методом Грисса, электронным параметрическим резонансом (ЭПР) и лазерной сканирующей конфокальной микроскопией (ЛСКМ), вместе с очистителем NO. Причинно-следственная связь существует между МСУНТ и NO в индукции развития БК, поскольку МСУНТ-индуцированный синтез NO и формирование БК были очевидно заблокированы удалением эндогенного NO его очистителем. Активность NO-образующего фермента нитратредуктазы (НР) увеличивалась в ответ на МСУНТ. Тунгстатное ингибирование НР не только нарушало производство NO, но и отменяло формирование БК, индуцированное МСУНТ. Добавление NG-нитро-L-аргинин метил эфир (l-NAME), ингибитора млекопитающего типообразного оксид азота синтеазы (NOS), не влияло на формирование БК. Совокупно мы предполагаем, что NO может действовать как нисходящий сигнальный молекула в контроле МСУНТ развития БК, по крайней мере частично через НР.
Введение
Существует много биологических и биомедицинских применений углеродных нанотрубок [1, 2]. Благодаря уникальной способности легко проникать через клеточные мембраны, биобезопасность углеродных нанотрубок всегда является темой для дебатов [3, 4]. Тем временем, поскольку производство и использование углеродных нанотрубок быстро растут, становится важно характеризовать детальные механизмы их цитотоксичности в людях и млекопитающих, и недавно в растениях [3,4,5,6,7,8,9]. Хорошо известно, что растения и их сообщества очень важны для людей и среды, и они также подвержены риску воздействия углеродных нанотрубок, из-за накопления в почвах через применение биосольных удобрений [6, 10, 11]. Как важные члены углеродных нанотрубок, токсичность многослойных углеродных нанотрубок (МСУНТ), состоящих из множества свернутых слоев графена, широко изучалась. Исследования на млекопитающих показали, что воздействие как МСУНТ, так и однослойных углеродных нанотрубок индуцировало оксидативное повреждение и активацию NF-κB в человеческих кератиноцитах и клетках A549 [9, 12]. МСУНТ и однослойные углеродные нанотрубки могут сливаться с плазматической мембраной, вызывая повреждение клеток через липидное перекисление и оксидативный стресс [9, 11, 13, 14]. Цитотоксичность и оксидативный стресс, индуцированные МСУНТ, а также умеренные воспалительные реакции наблюдались в человеческих эндотелиальных клетках пуповинной вены [15]. Предыдущее исследование предполагало, что первичная токсичность МСУНТ в красной шпинатной культуры в основном происходила от сверхпродукции реактивных форм кислорода (РФК), и токсические эффекты могли быть обращены дополнительной аскорбиновой кислотой [7]. В этом смысле МСУНТ рассматриваются как новый стресс-фактор для организмов, как в животных, так и в растениях.
Формирование боковых корней (БК), важный детерминант архитектуры корневой системы, рассматривается как индикатор адаптивного ответа на различные стрессы [16]. В высших растениях формирование БК влияют фитохормоны и широкий спектр экологических сигналов, включая доступность воды, питательных веществ и абиотические стрессы, такие как гипоксия и тяжелометалловый стресс [17,18,19]. Тем временем достаточные доказательства подтвердили, что формирование БК не только служит физической поддержкой, но и способствует поглощению воды и питательных веществ для роста и развития растений [19,20,21]. Различные экологические сигналы могут запускать несколько специфических стресс-индуцированных морфогенных ответов (СИМР), включая стимуляцию формирования БК и ингибирование удлинения основного корня [17]. Регуляция формирования БК также жестко контролируется фитохормонами, такими как ауксин, и предполагалось активирование генов регуляторов клеточного цикла в ответ на ауксин [19, 22]. Тем временем участие некоторых малых молекул в ауксин-индуцированной органогенезе корней подтверждалось в огуреце, томате, сое и рапсе [23,24,25,26,27]. Эти малые молекулы включают перекись водорода (H2O2), оксид азота (NO), угарный газ (CO) и водородный газ (H2).
Среди этих, NO, свободно-радикальный газ, показан как имеющий множественные физиологические функции в растениях [28, 29]. Помимо усиления адаптации растений к стрессам, функции NO включают стимуляцию развития корневых волосков, приключенческого укоренения и формирования боковых корней [30,31,32,33], хотя энзимный ресурс(ы) биосинтеза NO в вышеупомянутых процессах остается неясным. В животных синтез NO из L-аргинина катализируется гем-содержащим ферментом оксид азота синтеазой (NOS) [34]. Хотя ген(ы), кодирующие ферменты NOS, не идентифицированы в растениях, млекопитающий NOS-подобный активность широко детектируется [35, 36], и ингибиторы млекопитающего NOS, такие как NG-нитро-L-аргинин метил эфир гидрохлорид (l-NAME), могут ингибировать генерацию NO в растениях [25, 33, 36,37,38,39]. Важно, что обширные генетические доказательства показали, что NO может производиться нитратредуктазой (НР), хорошо известным ферментом, отвечающим за азотный обмен в растениях [28]. Участие НР-зависимого производства NO в замыкании устьиц и холодной акклимации демонстрировалось генетически [37, 38]. Наше предыдущее исследование показало, что НР-зависимый синтез NO участвует в ауксин-индуцированном водородном газо-опосредованном формировании боковых корней [39].
До настоящего времени разные реакции в формировании БК, стимуляция или ингибирование, соответственно сообщались в различных видах растений при добавлении наноматериалов, включая МСУНТ [40,41,42,43], золотые наночастицы (Au NP, [44]), оксид цинка наночастицы (ZnO NP [45, 46];), диоксид титана наночастицы (TiO2 NP [46];) и оксид графена (GO [47,48,49];) (Таблица 1), и никакое исследование еще не предоставило окончательное доказательство роли NO в вышеуказанных ответах. В этом исследовании детекция эндогенного NO методом Грисса, лазерной сканирующей конфокальной микроскопией (ЛСКМ) и анализом электронного параметрического резонанса (ЭПР) раскрыла, что уровень NO увеличивался в рассаде томата, обработанной МСУНТ. После этого наблюдали формирование БК. Мы дальше изучали участие NO в формировании БК, запущенном МСУНТ, манипулируя эндогенными уровнями NO с использованием очистителя NO и антагонистов, ингибирующих активность НР и млекопитающего-подобного NOS. Дальнейший эксперимент раскрыл, что НР-зависимый NO может быть, по крайней мере частично, необходим для формирования БК в ответ на МСУНТ. Эта работа таким образом открывает новое окно для понимания биологических эффектов наноматериалов в растениях.
Материалы и методы
Химикаты
Если не указано иное, все остальные химикаты получены от Sigma-Aldrich (Сент-Луис, МО, США). МСУНТ, приобретенные у Sigma-Aldrich, были охарактеризованы как описано ранее [50]. Внешний диаметр, внутренний диаметр и длина МСУНТ составляли 6–12 нм, 2,5–5 нм и 1–9 мкм соответственно. После ультразвуковой обработки полученная гомогенная коллоидная суспензия стерилизовалась и использовалась.
Другие углеродные наночастицы получены от Nanjing XFNANO Materials Tech Co., Ltd., включая однослойные углеродные нанотрубки (ОСУНТ, XFS22; чистота > 95%, диаметр 1–2 нм, длина 5–30 мкм, удельная поверхность > 1075 м2/г), графен (XF001W; чистота ~ 99%, диаметр 0,5–5 мкм, толщина ~ 0,8 нм, однослойное соотношение ~ 80%, BET удельная поверхность 500~1000 м2/г; электросопротивление ≦ 0,30 Ом·см), и активный углерод (АУ, XFP06; чистота > 95%, размер частиц 5 ± 1 мкм, поровый объем 1–1,2 см3/г, диаметр пор 2,0–2,2 нм, удельная поверхность ~ 1500–1700 м2/г).
Кроме того, нитроprusсид натрия (SNP) использовался как NO-высвобождающее соединение [30,31,32,33]. 2-(4-Карбоксифенил)-4,4,5,5-тетраметилимидазолин-1-оксил-3-оксид калиевой соли (cPTIO) рассматривался как очиститель NO [51,52,53,54]. Тунгстат (Тг; ингибитор НР [28, 33, 37, 55,56,57];) и NG-нитро-L-аргинин метил эфир гидрохлорид (NAME; ингибитор млекопитающего NOS-подобного фермента [25, 33, 36,37,38,39];) также применялись. В этом исследовании концентрации вышеуказанных химикатов определяли в предварительных экспериментах, из которых наблюдались значимые реакции.
Растительный материал, условия выращивания и определение формирования БК
Томат (Solanum lycopersicum L.) семена «Jiangshu 14» любезно предоставлены Нанкинским сельскохозяйственным институтом, Нанкинг, провинция Цзянсу, Китай. Отобранные семена одинакового размера проращивали в дистиллированной воде при 25 ± 1 °C в темноте в течение 3 дней. Отобранные идентичные рассады с корешками 2–3 мм затем переносили в 6 мл растворов обработки, содержащих указанные концентрации МСУНТ, 200 нМ 1-нафтилацетиновой кislоты (NAA; хорошо известный ауксин), 0,1 мМ SNP, 0,2 мМ cPTIO, 20 мкМ тунгстата (Тг), 0,2 мМ NAME и других углеродных наночастиц, включая 5 мг/мл однослойных углеродных нанотрубок (ОСУНТ), графена и активного углерода (АУ), отдельно или в комбинации для указанных временных точек. Рассаду выращивали в освещенном инкубаторе (25 ± 1 °C) с интенсивностью света 200 мкмоль м−2 с−1 при 14/10 ч (свет/темнота) фотопериоде.
После обработок делали снимки, а количество и длина появившихся боковых корней (> 1 мм) на рассаде затем определяли с помощью программного обеспечения Image J (https://rsb.info.nih.gov/ij/) [39, 58]. Как описано ранее, использовали только боково-корнево-индуцируемые сегменты для последующего анализа.
Визуализация распределения МСУНТ передаточной электронной микроскопией
Распределение МСУНТ в корне рассады томата характеризовали с помощью передаточной электронной микроскопии (TEM; JEOL, JEM-200CX, Токио, Япония). Подготовка образца для TEM-анализа соответствовала предыдущему протоколу [59].
Визуализация эндогенного NO лазерной сканирующей конфокальной микроскопией
NO-образование проводили с использованием довольно специфического NO-флуоресцентного зонда 4-амино-5-метиламино-2′,7′-дифлуорфлуоресцеин диацетат (DAF-FM DA). После тщательного промывания зонда изображения получали с помощью лазерной сканирующей конфокальной микроскопии Zeiss LSM 710 (Carl Zeiss, Оберкохен, Германия, возбуждение при 488 нм, эмиссия при 500–530 нм для анализа NO). В нашем эксперименте 20 индивидуальных образцов случайным образом отбирали и измеряли на обработку. Фотографии представительны для идентичных результатов.
Определение содержания NO методом Грисса
Согласно ранее описанным методам [50], содержание NO определяли методом Грисса. Важно, для избежания интерференций, вызванных концентрированным содержанием нитратов и нитритов в растениях, идентичные образцы, предварительно инкубированные в 200 мкМ cPTIO (очистителе NO) в течение 30 мин, рассматривали как пустые образцы. После добавления реактива Грисса на 30 мин абсорбцию регистрировали при 540 нм, а содержание NO определяли путем сравнения со стандартной кривой NaNO2.
Определение NO электронным параметрическим резонансом (ЭПР)
Согласно нашим предыдущим методам [39, 55, 60], определение уровня NO с помощью электронного параметрического резонанса (ЭПР) проводили. Органический растворительный слой использовали для определения NO на спектрометре Bruker A300 (Bruker Instrument, Карлсруэ, Германия) при следующих условиях: комнатная температура; микроволновая частота, 9,85 ГГц; микроволновая мощность, 63,49 мВт; и модуляционная частота, 100,00 кГц.
Определение активности нитратредуктазы (НР)
Активность НР детектировали спектрофотометрически при 540 нм согласно предыдущему методу [57]. Произведенный нитрит определяли спектрофотометрически при 540 нм добавлением 1 мл 1% (м/об) сульфаниламида в 3 М HCl вместе с 1 мл 0,02% (об/об) n-(1-нафтил)-этилендиамина.
Статистический анализ
Где указано, результаты выражались как средние значения ± SE трех независимых экспериментов с тремя биологическими репликатами для каждого. Статистический анализ выполняли с использованием программного обеспечения SPSS Statistics 17.0. Для статистического анализа выбирали دانкановский множественный тест (p < 0,05) как подходящий.
Результаты
МСУНТ не только проникают в корневые клетки, но и стимулируют формирование БК
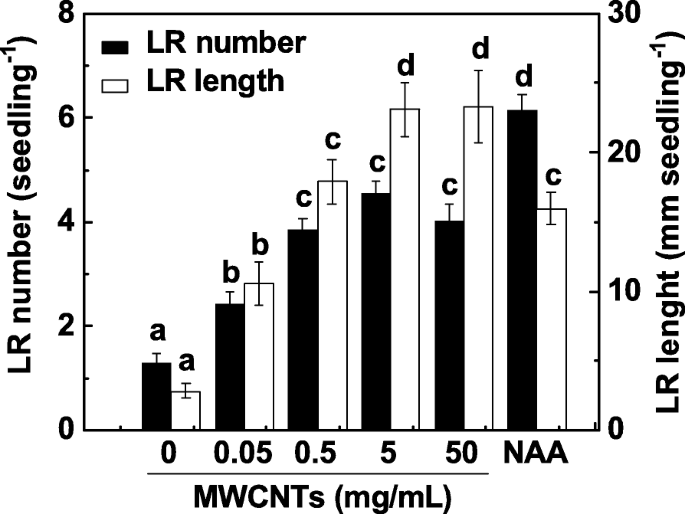
Формирование БК является основным детерминантом архитектуры корневых систем. Для изучения эффекта МСУНТ на формирование БК, 3-дневная рассада томата инкубировали с рядом концентраций МСУНТ (0,05, 0,5, 5 и 50 мг/мл) в течение 3 дней. Применение 1-нафтилацетиновой кislоты (NAA) рассматривали как положительный контроль. В нашем эксперименте как количество БК, так и их длина определялись как два параметра формирования БК. Как показано на Рис. 1, по сравнению с контрольными образцами, экзогенные МСУНТ значительно индуцировали формирование БК примерно дозозависимым образом, с максимальным эффектом при 5 и 50 мг/мл. Подобная индуцируемая реакция наблюдалась при введении 200 нМ NAA. Учитывая стоимость МСУНТ и индуцируемую реакцию в формировании БК, 5 мг/мл МСУНТ применяли в следующих экспериментах.
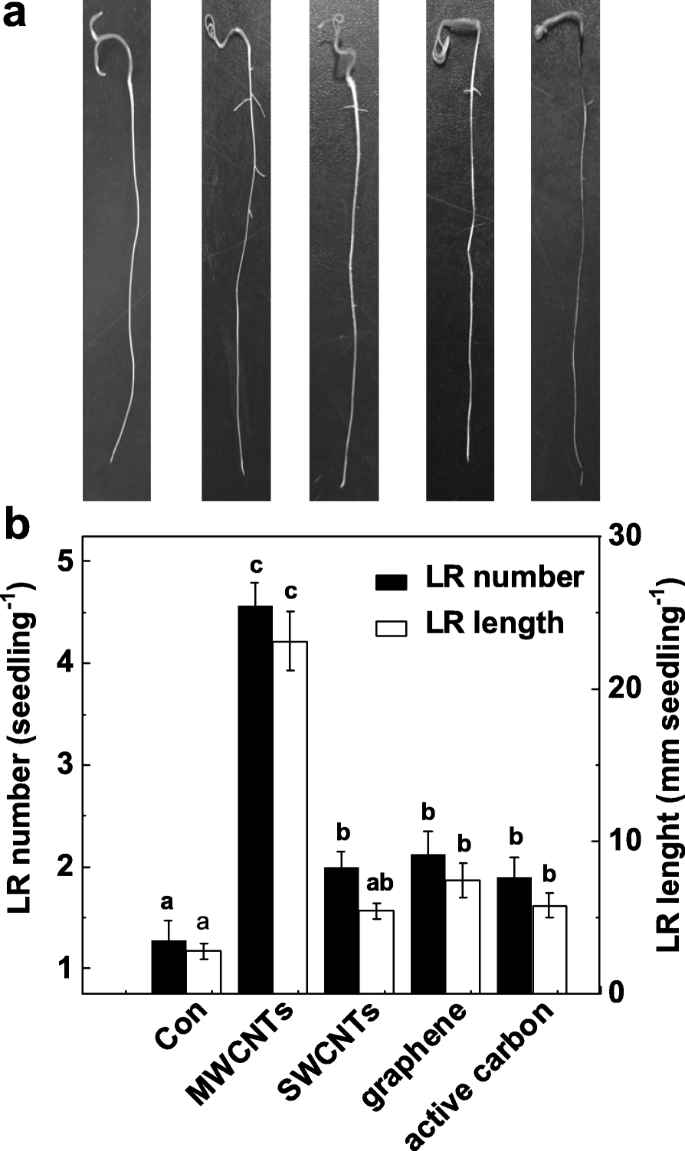
Для подтверждения специфической функции МСУНТ в индукции формирования БК, мы дополнительно исследовали, имеют ли другие аллотропии МСУНТ такие индуцирующие эффекты. Как показано на Рис. 2а, все эти углеродные наноматериалы демонстрировали токсические эффекты на рост побегов (данные не показаны). Интересно, что применение МСУНТ, однослойных углеродных нанотрубок (ОСУНТ), графена и активного углерода с идентичной концентрацией (5 мг/мл) могло дифференциально приводить к увеличению количества и длины БК по сравнению с химически свободными контрольными растениями (Рис. 2б). Среди этих химикатов максимальная индуцируемая реакция обнаруживалась в рассаде томата, инкубированной с МСУНТ.
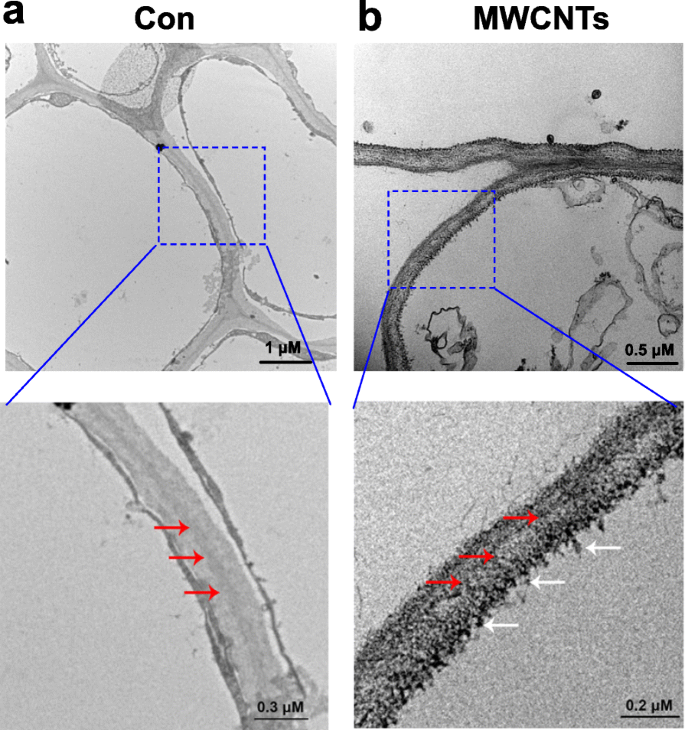
С помощью передаточной электронной микроскопии (TEM) распределение МСУНТ можно легко оценить. Результаты, показанные на Рис. 3, раскрыли, что МСУНТ, когда экзогенно применялись, могли абсорбироваться рассадой томата, и распределение МСУНТ находилось в корневых клетках. Этот результат можно понять, поскольку корни рассады напрямую культивируются в жидком растворе, содержащем МСУНТ.
МСУНТ-индуцированный синтез NO и последующее формирование БК чувствительны к cPTIO, очистителю NO
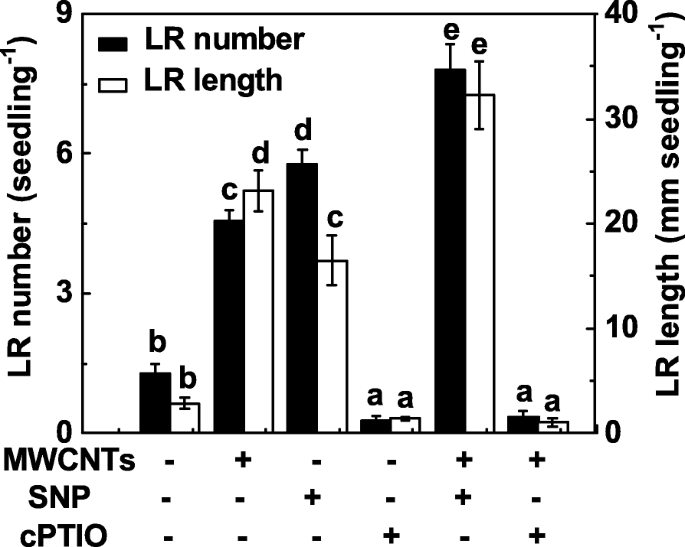
Для изучения того, участвует ли NO в МСУНТ-индуцированном формировании БК, функцию NO в формировании БК, вызванном МСУНТ, оценивали манипулируя эндогенными уровнями NO с использованием NO-высвобождающего соединения и очистителя. Аналогично предыдущим результатам [31], введение нитроprusсида натрия (SNP) могло приводить к индукции формирования БК, и аддитивная реакция наблюдалась, когда SNP и МСУНТ применялись вместе (Рис. 4). Когда добавляли 2-(4-карбоксифенил)-4,4,5,5-тетраметилимидазолин-1-оксил-3-оксид калиевую соль (cPTIO; очиститель NO), стимулирующие реакции в формировании БК, вызванные МСУНТ, были значительно нарушены. Само по себе cPTIO могло ингибировать развитие БК по сравнению с химически свободным контролем, указывая на важную роль эндогенного NO в органогенезе корней.
Для дальнейшей оценки важной роли эндогенного NO в ответе МСУНТ, временной ход производства NO ин виво сначала детектировали методом Грисса. Во время вышеуказанного определения идентичный фильтрат, предварительно обработанный cPTIO, рассматривали как пустой для точных результатов. Наблюдали, что производство NO в корнях рассады томата драматически увеличивалось до 24 ч после обработки МСУНТ, а затем восстанавливалось до начальных уровней (48 ч; Рис. 5а). Вышеуказанный максимальный уровень эндогенного NO, запущенный МСУНТ на 24 ч, очевидно отменялся cPTIO, очистителем NO, указывая на специфическую роль NO.
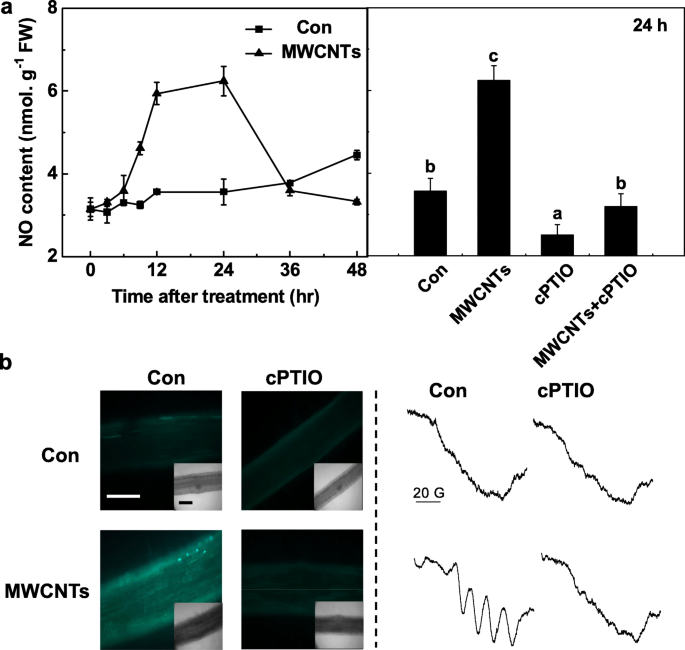
Для подтверждения вышеуказанных результатов применили и ЛСКМ, и ЭПР. Во-первых, изменения в эндогенных уровнях NO в корнях рассады томата отслеживали маркировкой NO с использованием клеточно-проницаемого, довольно NO-специфического флуоресцентного зонда DAF-FM DA и визуализацией с ЛСКМ. Аналогично предыдущим результатам (Рис. 5а), в присутствии cPTIO увеличенная DAF-FM-зависимая флуоресцентная интенсивность, запущенная МСУНТ, была в значительной степени отменена (Рис. 5б). Эти результаты подразумевали, что DAF-FM-индуцированная флуоресценция связана с эндогенными уровнями NO в корнях рассады томата.
МСУНТ-индуцированное производство NO подтверждали ЭПР-спектроскопией. Как ожидалось, корни рассады, обработанные 24 ч с МСУНТ, представили типичную гипертонкую триплетную структуру NO-комплекса. Однако добавление cPTIO отменяло вышеуказанный сигнал, указывая на то, что воздействие МСУНТ действительно привело к сильному производству NO (Рис. 5б). Совокупно эти данные предполагали, что синтез NO может быть необходим для МСУНТ-индуцированного формирования БК в рассаде томата.
НР может быть ответственен за МСУНТ-индуцированное производство NO и последующее формирование БК
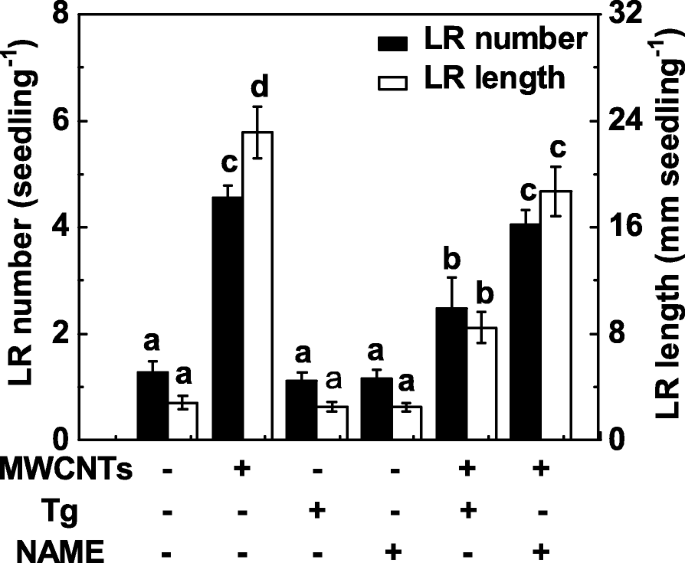
Поскольку НР и млекопитающий-подобный NOS — два основных фермента, связанные с синтезом NO в растениях, тунгстат (ингибитор НР) и NAME (ингибитор млекопитающего NOS) применяли в последующем эксперименте. Здесь обработка тунгстатом существенно подавляла стимуляцию формирования БК в корнях рассады томата, обработанной МСУНТ (Рис. 6). Сравнительно, индукция формирования БК, запущенная МСУНТ, не была сильно ингибирована добавлением NAME, указывая на то, что млекопитающий-подобный NOS может не быть целевым NO-синтезирующим ферментом, ответственным за производство NO, вызванное МСУНТ. Также наблюдали незначительное, но незначимое уменьшение формирования БК в рассаде томата, когда либо тунгстат, либо NAME применялись отдельно.
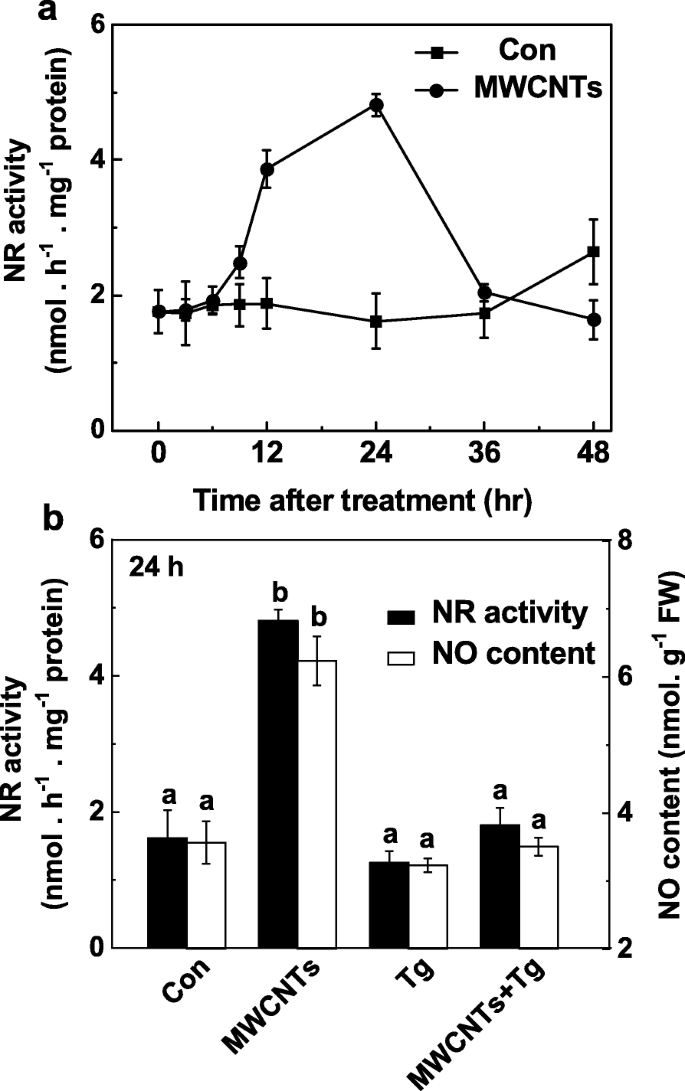
Роль НР в МСУНТ-индуцированном формировании БК дополнительно изучали путем мониторинга производства NO в ответ на примененные МСУНТ с или без тунгстата. По сравнению с изменениями в эндогенном производстве NO (Рис. 5а), временной анализ активности НР показывал подобную тенденцию (Рис. 7а), также достигая пика в 24 ч после обработки МСУНТ. Эти результаты предполагали, что МСУНТ-индуцированное увеличение производства NO может в основном происходить из усиленной активности НР. Последовательно, ингибирование НР-зависимого производства NO тунгстатом подтверждалось методом Грисса (Рис. 7б), ЛСКМ и ЭПР (Дополнительный файл 1: Рисунок S1).
Обсуждение
Фитотоксичность является важным соображением в понимании потенциального экологического воздействия наночастиц [4, 7, 61,62,63]. Обширные доказательства показали, что МСУНТ токсичны для растений, включая индукцию оксидативного повреждения, ингибирование прорастания семян, роста и развития корней [11, 63, 64]. Однако, будучи фенотипом СИМР, ветвление корней через формирование БК является важным компонентом адаптивности корневой системы к различным экологическим сигналам [17]. В этой работе мы интегрировали биологический, фармакологический и биохимический анализ для демонстрации участия НР-опосредованного производства NO в МСУНТ-индуцированном формировании БК, по крайней мере частично в наших экспериментальных условиях. Также функция NO в органогенезе корней, стимулированном МСУНТ, подчеркнула центральные роли этого второго мессенджера, вовлеченного в процессы развития растений и адаптации к стрессу [29,30,31,32,33, 37, 38].
Во-первых, мы подтвердили, что 5 мг/мл МСУНТ (ВН 6–12 нм) могли проникать в корневые ткани (Рис. 3). После этого наблюдалась индукция формирования БК томата (Рис. 1), имитирующая индуцирующие роли NAA и SNP (Рис. 4), хорошо известного NO-высвобождающего соединения [30, 31]. Подобные индуцирующие реакции обнаруживались в смолистых деревьях [41], салате [42] и Arabidopsis [43] при вызове МСУНТ (ВН 6–13 нм, около 9,5 нм и 30–40 нм соответственно). Например, применение либо престатого МСУНТ (p-МСУНТ), либо карбоксил-функционализированного МСУНТ (c-МСУНТ) (средний диаметр 9,5 нм) могло стимулировать развитие БК в рассаде салата [42]. Напротив, ингибирование основного корня и даже формирования БК одновременно находились в соевых растениях при воздействии МСУНТ (ВН 20–70 нм [40];). Сравнивая с данными внешнего диаметра МСУНТ (Таблица 1), мы предполагали, что эффекты МСУНТ на формирование БК варьируются с их диаметрами, показывая стимуляцию при меньшем диаметре и ингибирование при большем диаметре. Безусловно, связанные механизмы должны быть тщательно изучены. Подобное явление подтверждалось в растениях с солевотерпимостью [50]. В сочетании с вышеуказанными результатами, было дополнительно выведено, что функция наноматериалов может варьироваться от вида, и наоборот, разные типы наноматериалов могут вызывать различные биологические эффекты. Однако другие влияющие факторы, такие как разные дозы МСУНТ [48] и даже условия выращивания растений, могут быть не легко исключены.
По сравнению с другими наноматериалами, включая ОСУНТ, графен и АУ с идентичной концентрацией, максимальная индукция в формировании БК и даже токсические эффекты на рост побегов наблюдались в МСУНТ (Рис. 2). Это может быть связано со специальными физическими характеристиками МСУНТ, одного типа наноматериалов, имеющих высокую электрическую проводимость, большую удельную поверхность, высокое соотношение сторон и замечательную термическую стабильность [65]. Токсические эффекты наноматериалов широко сообщались в огурце, капусте, моркови, луке и др. [66, 67].
Достаточные доказательства показывают, что NO, действуя как сигнальная молекула, может регулировать широкий спектр процессов растений от экологической адаптации до развития, последнее из которых включает прорастание семян и органогенез корней [29, 68,69,70,71,72,73]. Наше последующее эксперимент раскрыло, что NO может участвовать в МСУНТ-индуцированном формировании БК. Хотя несколько методов для визуализации производства NO в растительных клетках применялись, недостатки, включая недостаточную чувствительность и интерференцию NO-независимыми молекулами, могут существовать в каждом методе [74]. Таким образом, три метода, отвечающие за визуализацию и определение NO, включая метод Грисса, ЛСКМ и ЭПР, вместе с применением cPTIO, очистителя NO, применялись в наших экспериментальных условиях. Используя три метода, мы наблюдали, что увеличенное эндогенное производство NO, индуцированное МСУНТ в рассаде томата, отменялось cPTIO (Рис. 5), очистителем NO [30,31,32]. Важно, что этот процесс коррелировал с биологической реакцией МСУНТ-индуцированного развития БК, которое было серьезно заблокировано, когда cPTIO применялся одновременно (Рис. 4).
Дальнейшая оценка этих реакций и потенциального источника(ов) NO, индуцированного экзогенно примененными МСУНТ, раскрыла, что производство NO и последующее формирование БК могут быть приписаны активности НР. В растениях производство NO в основном генерируется из НР и млекопитающего-подобного NOS белка [28]. Однако ген растений NOS все еще не идентифицирован [35, 75, 76], хотя некоторые эксперименты с использованием ингибиторов млекопитающего фермента NOS предоставляли некоторые доказательства L-аргинин-зависимого пути в производстве NO [36, 76]. НР подтвержден как самый важный источник NO в растениях [28]. Предыдущие исследования показывали, что НР-зависимое производство NO функционирует как нитрат-связанный сигнал, вовлеченный в регуляцию архитектуры корней [32, 33]. Кроме того, НР-зависимое производство NO тесно ассоциировалось с холодной акклимацией [38], солевотерпимостью [50] и АБК-индуцированным замыканием устьиц [77]. Наши результаты дополнительно раскрыли, что тунгстат (ингибитор НР) очевидно нарушал МСУНТ-индуцированное формирование БК, особенно в длине БК (Рис. 6). Напротив, наблюдалось лишь незначительное уменьшение длины БК, и никакой значимой разницы в количестве БК не наблюдалось при использовании l-NAME (ингибитора млекопитающего NOS). Последовательно, биохимический анализ показал, что активность НР очевидно увеличивалась МСУНТ (Рис. 7а), параллельно изменениям в производстве NO (Рис. 5а). Вышеуказанные реакции могли быть полностью заблокированы тунгстатом (Рис. 7а, Дополнительный файл 1: Рисунок S1). Таким образом, мы вывели, что увеличенное эндогенное производство NO, индуцированное МСУНТ, в основном атрибутируется НР-пути. Безусловно, дальнейшие генетические доказательства должны быть исследованы.
Заключение
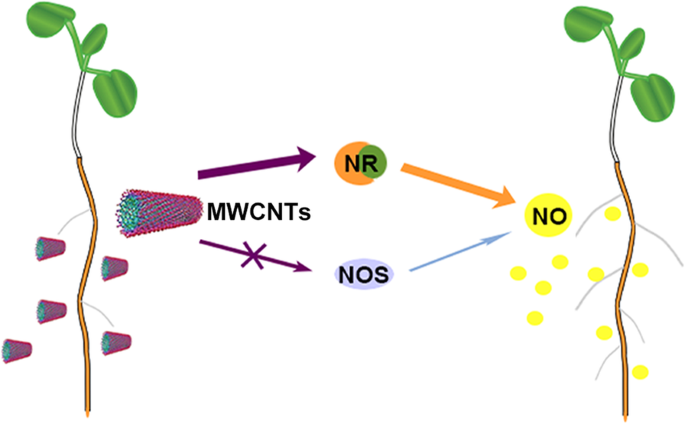
Подводя итог, мы предоставляем доказательства того, что МСУНТ-индуцированное производство NO через НР может быть необходимым для формирования боковых корней томата, и это резюмировано на Рис. 8. Важно, что вышеуказанные находки дают понимание сложного молекулярного механизма функций МСУНТ в растениях.
Доступность данных и материалов
Все данные полностью доступны без ограничений.
Аббревиатуры
- CO:
- Угарный газ
- cPTIO:
- 2-(4-Карбоксифенил)-4,4,5,5-тетраметилимидазолин-1-оксил-3-оксид калиевой соли
- DAF-FM DA:
- 4-Амино-5-метиламино-2′,7′-дифлуорфлуоресцеин диацетат
- ЭПР:
- Электронный параметрический резонанс
- GO:
- Оксид графена
- H2:
- Водородный газ
- H2O2:
- Перекись водорода
- l-NAME:
- NG-Нитро-L-аргинин метил эфир
- БК:
- Боковой корень
- ЛСКМ:
- Лазерная сканирующая конфокальная микроскопия
- МСУНТ:
- Многослойные углеродные нанотрубки
- NAA:
- 1-Нафтилацетиновая кislотa
- NO:
- Оксид азота
- NOS:
- Оксид азота синтеаза
- НР:
- Нитратредуктаза
- РФК:
- Реактивные формы кислорода
- СИМР:
- Стресс-индуцированный морфогенный ответ
- SNP:
- Нитроprusсид натрия
- ОСУНТ:
- Однослойные углеродные нанотрубки
- TEM:
- Передаточная электронная микроскопия
- Тг:
- Тунгстат
Наноматериалы
- Углеродные нанотрубки обеспечивают рекордную гибкость и скорость в электронике
- Визуализация растворенного океанческого углерода на атомном уровне
- Протезы из углеродного волокна: как высокопроизводительные материалы трансформируют замену конечностей
- Кремнезамещенный оксинитрид бора-углерода: новый безметаллический фото катализатор с повышенной солнечной …
- Комплексный атомный и электронный анализ стакановидных углеродных нановолокон
- Видимое освещение усиливает чувствительность AuNP-модифицированных стеклоуглеродных электродов к определени…
- Наночастицами-усиленная червиобразная мицеллярная система: дизайн, реология и механистические инсайты
- Графеноксид-интегрированные nHAC/PLGA скаффолды стимулируют пролиферацию остеобластов и регенерацию кости
- Сравнительный анализ электрохимических, биомедицинских и тепловых свойств натуральных против синтетически…
- Повышение безопасности CL-20: снижение ударной чувствительности через углеродные наноматериалы для теплопров…